

БЦАТ2 обликује неупаљено туморско микроокружење и изазива отпорност на анти-ПД-1/ПД-Л1 имунотерапију негативно регулишући проинфламаторне хемокине и имунитет против рака
Oct 25, 2023
Да би се побољшала стопа одговора монотерапије блокаде имунске контролне тачке (ИЦБ), неопходно је пронаћи нови циљ у комбинованој терапији. Анализом индикатора који се односе на микроокружење тумора (ТМЕ), потврђено је да БЦАТ2 обликује неупаљени ТМЕ код рака мокраћне бешике. Резултати мултиомике показују да БЦАТ2 има инхибиторни ефекат на регрутацију цитотоксичних лимфоцита ограничавањем активности проинфламаторних путева повезаних са цитокином/хемокином и путања хемотаксије Т-ћелија. Имунотестови откривају да лучење хемокина повезаних са ЦД8+Т ћелијама одржава снажну негативну корелацију са БЦАТ2, стварајући тенденцију смањења ЦД8+Т ћелија око БЦАТ{11}} туморских ћелија од далеко до близу. Третман недостатка БЦАТ2 и анти-ПД-1 антитела има синергистички ефекат ин виво, што имплицира потенцијал БЦАТ2 у комбинованој терапији. Штавише, вредност БЦАТ2 у предвиђању ефикасности имунотерапије је потврђена у више имунотерапијских кохорти. Заједно, као кључни молекул у ТМЕ, БЦАТ2 је мета у настајању у комбинацији са ИЦБ-ом и биомаркером прецизне терапије.

Предности цистанцхе тубулоса-Антитумор
1. Представљање
Рак мокраћне бешике (БЛЦА) је један од најчешћих малигнитета у уринарном систему.[1] Процењује се да се сваке године широм света дијагностикује преко 430000 пацијената.[2] Упркос радикалном хируршком лечењу, скоро половина пацијената са мишићно инвазивним карциномом бешике јавља се метастазама.[3] Дакле, системска терапија игра важну улогу у узнапредовалом карциному бешике. Са развојем имунотерапије, посебно блокаде имунске контролне тачке (ИЦБ), акумулирани докази су показали да ИЦБ има одличне перформансе у елиминисању туморског оптерећења.[4] Међутим, још увек постоји велики број пацијената који не реагују на монотерапију ИЦБ због примарне резистенције или стечене резистенције.[5] За решавање незадовољене клиничке потребе, комбинација других рационалних терапија са ИЦБ-ом пружа потпуно нови увид у резистенцију на монотерапију. Микроокружење тумора (ТМЕ) је компликован систем и има дубок утицај на ефикасност имунотерапије.[6] Са недовољним нивоом инфилтрације цитотоксичних Т лимфоцита (ЦТЛ), неупаљени ТМЕ се сматра критичним фактором у неуспеху стварања снажног антитуморског имунолошког одговора током имунотерапије.[7] Због тога је од виталног значаја пронаћи кључни молекул који може преобликовати неупаљени ТМЕ у упаљени ТМЕ и који има потенцијал да буде мета комбиноване терапије. Разгранати ланац аминотрансферазе 2 (БЦАТ2) је главни ензим у процесу метаболизма сумпорних аминокиселина.[8] Ли ет ал. открили да је БЦАТ2 неопходан за развој рака панкреаса посредовањем у катаболизму аминокиселина разгранатог ланца (БЦАА).[9] Лее ет ал. је показао да недостатак БЦАТ2 инхибира раст тумора дукталног аденокарцинома панкреаса (ПДАЦ) регулацијом метаболизма липида.[10] Иако је било неколико истраживања документованих да БЦАТ2 директно утиче на биолошки процес тумора регулацијом метаболичких путева, његова улога у регулисању имунолошког статуса ТМЕ никада није истражена. У нашој студији, кроз свеобухватну анализу индикатора повезаних са ТМЕ у Ксиангиа БЛЦА кохорти и више јавних БЛЦА кохорти, прегледали смо да БЦАТ2 вероватно обликује имуносупресивни ТМЕ у БЛЦА. За истраживање молекуларних механизама, даље смо извршили једноћелијско секвенцирање РНК (сиРНА сек) и булк-РНА секвенцу, откривајући да БЦАТ2 игра репресивну улогу у регрутовању ЦТЛ-а у ТМЕ, инхибирајући активности сигналних путева повезаних са цитокином/хемокином и Сигнални путеви Тћелијске хемотаксе. Ин витро, мулти-имуноесеји су показали да секреција хемокина повезаних са ЦТЛ има стабилне негативне корелације са експресијом БЦАТ2. Према панорамској анализи микромрежа ткива (ТМА), пронашли смо међусобно искључиву везу између ЦТЛ и БЦАТ2+ туморских ћелија у просторној дистрибуцији. Ин виво, кооперативни ефекат је откривен у комбинованој терапији губитка БЦАТ2 и ИЦБ. Што је још важније, његова улога у предвиђању куративног ефекта имунотерапије потврђена је у кохорти имунотерапије Ксиангиа БЛЦА.

цистанцхе тубулоса-побољшава имуни систем
2. Резултати
2.1. БЦАТ2 негативно корелира са имунитетом ТМЕ против рака у БЛЦА
Код већине типова рака, експресија БЦАТ2 је већа у ткивима рака него у нормалним ткивима (слика С1А, пратеће информације) и његов образац експресије у БЛЦА је потврђен у Ксиангиа БЛЦА кохорти (слика С1Б, пратеће информације). Осим тога, БЦАТ2 је широко експримиран у различитим ћелијским линијама рака (слика С1Ц, пратеће информације). Надаље, резултати свеобухватне анализе пан-канцера на систему хемокина, МХЦ, имуностимулаторима и ТИИЦ-има показали су да БЦАТ2 има значајне имуносупресивне ефекте у неколико типова рака, укључујући рак мокраћне бешике (БЛЦА), рак дојке (БРЦА), бубрежне папиларне ћелије карцином (КИРП), аденокарцином панкреаса (ПААД), сарком (САРЦ) и карцином штитасте жлезде (ТХЦА) (слика С2А, Б, пратеће информације). Поред тога, пронађене су негативне корелације између БЦАТ2 и уобичајених контролних тачака за инхибицију имунитета (ПД- 1, ПД-Л1, ЦТЛА-4 и ЛАГ-3) (слика С2Ц–Ф, пратеће информације ). Кроз свеобухватну анализу пан-карцинома, открили смо да БЦАТ2 има најдубљи имуносупресивни ефекат у БЛЦА. Стога смо даље истражили његову имунолошку улогу у БЛЦА. На основу вредности медијане експресије БЦАТ2, поделили смо појединце у групу са високим нивоом БЦАТ2 и групу са ниским нивоом БЦАТ2 у кохорти ТЦГА-БЛЦА. Очигледно је да је низ хемокина, хемокинских рецептора, молекула повезаних са МХЦ и имуностимулатора смањено изражено у групи са високим нивоом БЦАТ2 и прекомерно у групи са ниским БЦАТ2 (Слика 1А). Сличан исход је пронађен у циклусу имунитета против рака, који покрива више битних корака у регрутовању и инфилтрацији имуних ћелија (Слика 1Б). Штавише, показали смо снажне негативне везе између нивоа инфилтрације имуних ћелија (ЦД8+Т ћелије, ЦД4+Т ћелије, ћелије убице природе (НК) и дендритске (ДЦ) ћелије) и БЦАТ2 у различитим алгоритми (слика 1Ц). Слично, нижа експресија ефекторских гена имуних ћелија (ЦД8+Т ћелија, НК ћелија, макрофаг, Т помоћна 1 (Тх1) ћелија и ДЦ ћелија) је пронађена у групи са високим БЦАТ2 у поређењу са ниским БЦАТ2 група (слика 1Д). Што је још важније, када се корелира БЦАТ2 са ТИС скором (слика С3, пратеће информације) и контролним тачкама инхибиције имунитета (слика 1Е), откривене су очигледне негативне везе између њих. Стога смо спекулисали да БЦАТ2 може негативно да регулише имуни одговор ТМЕ и дубоко утиче на ефикасност имунотерапије. Штавише, горе наведени резултати су добро потврђени у девет независних БЛЦА кохорти (ГСЕ31684, ГСЕ32894, ГСЕ48075, ГСЕ48276, ГСЕ69795, ГСЕ83586, ГСЕ86411, ГСЕ87304 и ГСЕ128704 информација, подршка Слици 128702). Коначно, поново смо потврдили повезаност између БЦАТ2 и ТМЕ у Ксиангиа БЛЦА кохорти. Доследно, експресија БЦАТ2 има негативну везу са активношћу циклуса имунитета против рака, нивоима инфилтрације ТИИЦ-а, ТИС скором и нивоима експресије контролних тачака имунитета (Слика 2А-Ц). Заједно смо открили да висока експресија БЦАТ2 формира неупаљени ТМЕ у БЛЦА, а ниска експресија БЦАТ2 обликује упаљени ТМЕ у БЛЦА.
2.2. Истраживање механизма БЦАТ2 у обликовању ТМЕ помоћу Булк РНА-сек и сиРНА-сек
У кохорти ТЦГА-БЛЦА, идентификовани су ДЕГ између група са високим/ниским БЦАТ2, група са високим/ниским имунолошким резултатом и група са високим/ниским стромалним резултатом (Слика С13А, пратеће информације). Занимљиво је да БЦАТ2 позитивно повезани ДЕГ-ови нису имали пресек са ДЕГ-овима који су позитивно повезани са имунолошким и стромалним резултатом (слика 2Д). У међувремену, исти феномен се десио у негативно повезаним ЕГ међу њима (слика С13Б, пратеће информације). Ови налази су показали да БЦАТ2 вероватно негативно регулише путеве повезане са имунитетом. Случајно, резултати ГО и КЕГГ анализа су открили да су БЦАТ2-повезани ДЕГ-ови најзначајније обогаћени путевима миграције леукоцита, активације Т ћелија и интеракције цитокин-цитокин рецептор (Слика 2Е, Ф). Стога смо спекулисали да БЦАТ2 обликује неупаљени ТМЕ у БЛЦА тако што инхибира активности путева повезаних са цитокином/хемокинима. Међутим, карактеристика масовног НА секвенцирања одређује његово ограничење, чији се ниво експресије гена израчунава средњом вредношћу свих ћелија у ткиву. Да би се превазишло ограничење, сиРНА је изведена на три БЛЦА узорка. Више од 19 000 ћелија је анализирано и класификовано у шест категорија: епителне ћелије, ћелије фибробласта, Т/НК ћелије, ендотелне ћелије, Б ћелије и мијелоичне ћелије (слика 3А), односе се на признате биомаркере (ЕПЦАМ, ЛИЗ, ЦД3Д, ЦОЛ1А1, ЦД79А, ЦД19, ПЕЦАМ1 и ВВФ).[11] Запањујуће је да је БЦАТ2 углавном експримиран у епителним ћелијама (ЕПЦАМ+), а не у ендотелним ћелијама и имуним ћелијама. На основу акумулације ЦНВ, ЕПЦАМ+ епителне ћелије су сматране малигним уротелним ћелијама. Да би се потврдио образац експресије БЦАТ2, две екстерне сиРНА кохорте су укључене у студију. У кохорти сцРНА ГСЕ135337, више од 36,000 ћелија је обрађено и подељено у пет кластера. Примарно експримирани ћелијски подтип БЦАТ2 је и даље био малигна уротелна ћелија бешике (Слика 3Б). Сличан образац експресије поново се појавио у кохорти сиРНА ГСЕ145137 (слика 3Ц). Стога је образац већинске експресије на малигним ћелијама закључио да БЦАТ2 делује као имунорегулаторни део у ТМЕ углавном помоћу различитих карактеристика ћелија рака. На основу нивоа експресије БЦАТ2, малигне уротелне ћелије су подељене у групу са високим нивоом БЦАТ2 и групу са ниским нивоом БЦАТ2. ГСЕА анализа ГО термина у сиРНА кохортама ГСЕ135337 и ГСЕ145137 открила је да је гомила путева везаних за цитокине/хемокине значајно смањена у групи са високим нивоом БЦАТ2, укључујући производњу хемокина, секрецију хемокина, регулацију одговора хемокина на сигнални пут посредованог хемокина, везивање рецептора хемокина, активност цитокина, везивање цитокина и везивање рецептора цитокина (слика 3Д-Г; слика С14Б, пратеће информације). У међувремену, хемотакса леукоцита, хемотакса лимфоцита, хемотакса Т ћелија и њихови регулаторни путеви имали су значајно негативне корелације са БЦАТ2 (слика 3Е-И; слика С14А, пратеће информације). ГСЕА анализа КЕГГ термина је показала да су путеви интеракције цитокин-цитокин рецептора и процесирања и презентације антигена очигледно смањени у групи са високим БЦАТ2 (Слика 3Ф). Заједно, висока експресија БЦАТ2 потискује активности проинфламаторних цитокина и путева повезаних са хемокинима, што доводи до смањеног нивоа инфилтрације ТИИЦ-а, што на крају обликује неинфламаторни ТМЕ.

Слика 1. БЦАТ2 негативно корелира са имунитетом против рака у ТМЕ БЛЦА. А) Образац експресије хемокина, хемокинских рецептора, МХЦ молекула и имуностимулатора у групама са високим и ниским БЦАТ2. Б) Активност циклуса имунитета на рак у групама са високим и ниским БЦАТ2. Седам боја представља седам корака у циклусу. *п < 0.05; **п < 0.01; ***п < 0,001. Ц) Корелације између БЦАТ2 и више типова имуних ћелија (ЦД8+Т ћелија, ЦД4+Т ћелија, ДЦ ћелија и НК ћелија) у шест независних алгоритама. Д) Обрасци експресије вишеструких подтипова имуних ћелија (ЦД8+Т ћелије, НК ћелије, макрофаги, Тх1 ћелије и ДЦ ћелије) повезаних ефекторских гена у групама са високим и ниским БЦАТ2. Е) Корелације између ефекторских гена повезаних са БЦАТ2 и ИЦБ. Број у кругу означава коефицијент корелације.
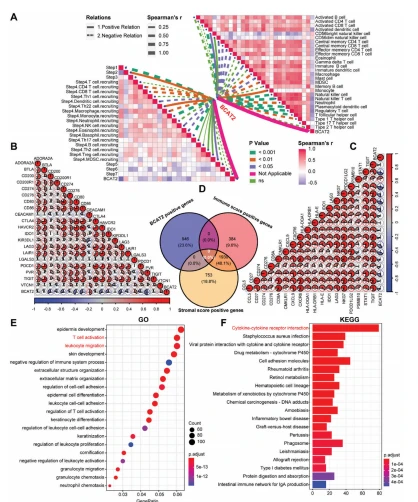
Слика 2. Валидација функције БЦАТ2 од стране Ксиангиа БЛЦА кохорте. А) Корелације између БЦАТ2/циклуса имунитета против рака (лево) и БЦАТ2/ТИИЦс (десно). Пуне и испрекидане линије означавају позитивне и негативне односе, дебљине линија означавају коефицијент корелације, линије различитих боја представљају п-вредност корелације. Б) Корелације између ефекторских гена повезаних са БЦАТ2 и ИЦБ. Ц) Корелације између ефекторских гена повезаних са БЦАТ2 и ТИС резултатом. Број у кругу представља коефицијент корелације. Д) Пресек позитивних гена везаних за БЦАТ2, имунолошки резултат и стромални резултат. Е,Ф) 20 најбољих сигналних путева обогаћивања ГО и КЕГГ анализа у БЦАТ{10}}сродним генима.

Слика 3. Истраживање механизма БЦАТ2 у обликовању ТМЕ помоћу булк РНА-сек и сцРНА-сек. А, Б) тСНЕ дијаграми једноћелијског обрасца експресије БЦАТ2 у Ксиангиа сиРНА кохорти и ГСЕ135337 кохорти. Ц) Виолин дијаграм једноћелијског обрасца експресије БЦАТ2 у кохорти ГСЕ145137. Д, Е) ГСЕА анализа ГО термина указује на активности путева везаних за цитокине/хемокине и путева повезаних са хемотаксом имуних ћелија између различитих БЦАТ2 група у кохорти ГСЕ135337. Ф) ГСЕА анализа КЕГГ термина указује на активности презентације антигена и интеракцију пута цитокина и рецептора цитокина између различитих БЦАТ2 група у кохорти ГСЕ145137. Г–И) ГСЕА анализа термина ГО указује на активности путева везаних за цитокине/хемокине, путева везаних за хемотаксију имуних ћелија и путева повезаних са миграцијом имуних ћелија између различитих БЦАТ2 група у кохорти ГСЕ145137. Ј, К) ГО и КЕГГ анализа ДЕГ између БЦАТ2 ОЕ и БЦАТ2 КД ћелијских линија.
2.3. БЦАТ2 варира обрасце експресије хемокина повезаних са ЦД8+Т-ћелијама и инхибира цитотоксични капацитет ЦТЛ-а
Да би се потврдили горе поменути путеви обогаћивања, БЦАТ2 прекомерна експресија (БЦАТ2 ОЕ) и БЦАТ2 кноцкдовн (БЦАТ2 КД) хумане (Т24)/мишје (МБ49) ћелијске линије рака бешике су успешно конструисане (слика С15А-Д, пратеће информације) и тестиране су са високопропусно секвенцирање РНК. Очекивано, ГО анализа Т24 ћелијских линија открила је да су ДЕГ значајно обогаћени путевима сигнализације посредоване хемокинима, одговором на хемокин, миграцијом леукоцита и миграцијом леукоцита (слика 3Ј). Анализа КЕГГ пута Т24 ћелијских линија показала је да су сигнални пут хемокина, пут интеракције рецептора цитокина и цитокина и пут рака мокраћне бешике значајно обогаћени (слика 3К). Слично, неколико критичних путева везаних за цитокине/хемокине пронађено је у ГО и КЕГГ анализама МБ49 ћелијских линија (слика С16А, Б, пратеће информације). Очигледно је да различити цитокини и хемокини играју кључну улогу у регулацији ТМЕ. Због тога је неопходно извршити скрининг цитокина/хемокина који су специфично регулисани БЦАТ2. Стога су ПроцартаПлек вишеструки имуноесеји примењени да би се идентификовале варијације секреције цитокина/хемокина у ћелијским линијама рака бешике човека и миша. Изненађујуће, нивои секреције ЦЦЛ3, ЦЦЛ4, ЦЦЛ5 и ЦКСЦЛ10 су повећани у људским и мишјим БЦАТ2-КД ћелијским линијама и смањени у људским и мишјим БЦАТ2-ОЕ ћелијским линијама (Слика 4А, Б; Слика С16Ц , Д, пратеће информације). У претходним студијама, ЦЦЛ3, ЦЦЛ4, ЦЦЛ5, ЦКСЦЛ9 и ЦКСЦЛ10 су сматрани кључним хемокинима за регрутовање ЦД8+Т ћелија у ТМЕ.[12] Сходно томе, за бољу свеобухватну анализу хемокина повезаних са ЦД8+Т-ћелијама, сви су укључени за даљу валидацију. Запањујуће је да су нивои експресије РНК ЦЦЛ3, ЦЦЛ4, ЦЦЛ5, ЦКСЦЛ9 и ЦКСЦЛ10 значајно смањени у БЦАТ2 ОЕ ћелијама и значајно повећани у БЦАТ2 КД ћелијама (Слика 4Ц). Слично томе, резултати ЕЛИСА-е су показали да нивои излученог протеина такође имају негативну корелацију са експресијом БЦАТ2 (Слика 4Д). Ови налази су показали да прекомерна експресија БЦАТ2 инхибира нивое транскриптома и протеина хемокина повезаних са ЦД8+Т-ћелијама, укључујући ЦЦЛ3, ЦЦЛ4, ЦЦЛ5, ЦКСЦЛ9 и ЦКСЦЛ10. Још важније, тест хемотаксе је открио да БЦАТ2 ОЕ ћелијска линија значајно инхибира способност хемотаксе ЦД8+Т ћелија (Слика 4Е, лево). Супротно томе, ћелијски супернатанти ћелијске линије БЦАТ2 КД су били способни да привуку више ЦД8+Т ћелија него његова негативна контрола (Слика 4Е, десно). Ови налази су показали да БЦАТ2 може утицати на капацитет хемотаксе ЦД8+Т ћелија регулацијом нивоа мРНК и протеина сродних хемокина. Штавише, коришћен је тест убијања ћелија рака посредован Т-ћелијама да се истражи варијација цитотоксичности Т ћелија након директног контакта са туморским ћелијама које експримирају другачији ниво БЦАТ2. Као што је приказано на слици 4Ф и слици С17А, Б (Информације за подршку), прекомерна експресија БЦАТ2 на туморским ћелијама директно је потиснула цитотоксичну функцију Т ћелија и обарање БЦАТ2 на туморским ћелијама значајно је преокренуло тенденцију. Анализа сакупљених Т ћелија проточном цитометријом открила је да пропорције ЦД8+ТНФ-𝛼+ Т ћелија и ЦД8+ИФН-𝛾+ Т ћелија имају значајне разлике у различитим системима кокултуре, што је значило огромну промену у активност ЦД8+Т ћелија (слика 4Г; слика С17Ц, Д, пратеће информације). Заједно, БЦАТ2 је способан да инхибира способност регрутовања ЦД8+Т ћелија регулацијом нивоа повезаних хемокина, као и супресијом активности ЦТЛ-а директним контактом. Поред тога, резултат теста убијања ћелија рака посредованог Т ћелијама (без групе Т ћелија) може закључити да БЦАТ2 игра онкогену улогу у раку бешике. Због тога су за валидацију ове хипотезе коришћени тест колоније на плочи и тест миграције/инвазије преко бунара. Као што се и очекивало, прекомерна експресија БЦАТ2 значајно је повећала способност пролиферације, миграције и инвазије туморских ћелија, а обарање БЦАТ2 је значајно потиснуло ово понашање (Слика С18А-Ф, пратеће информације).
2.4. Валидација ексклузивног просторног односа између БЦАТ2+ ћелије тумора и ЦД8+Т ћелије од стране ТМА из Ксиангиа БЛЦА кохорте
Према резултатима експеримената масовне РНА-сек, сцРНА-сек и витро, показали смо да БЦАТ2 игра имуносупресивну улогу у БЛЦА тако што потискује регрутовање и цитотоксичност ЦД8+Т ћелија. Међутим, интеракција БЦАТ2+ туморских ћелија и ЦД8+Т ћелија је још увек непозната на нивоу људског ткива. У кохорти Ксиангиа БЛЦА, репрезентативне слике и укупни резултат ИХЦ-а открили су негативну корелацију између БЦАТ2 и ЦД8 (Р=−0.38, п=0.0 038) (Слика 5А, Б). Вишебојно ИФ бојење БЦАТ2+ туморских ћелија (БЦАТ2+ЦК19+) и БЦАТ{{17}ЦД8+Т ћелија је спроведено у ТМА и полуаутоматски анализирано помоћу ТиссуеФАКСС платформа за панорамску квантификацију. Као што је приказано на слици 5Ц, обим експресије БЦАТ2 и ЦК19 се у великој мери преклапао. Насупрот томе, обим експресије БЦАТ2 и ЦД8 био је различит и одвојен. Детаљне пропорције коекспресије БЦАТ2+ЦК19+ ћелија и БЦАТ2+ЦД8+Т ћелија биле су 87,29% и 5,09% (слика 5Д, Е), што је било у складу са образац експресије БЦАТ2 у сцРНА-секв. У укупном ТМА, и даље је постојала значајна разлика у пропорцији коекспресије између њих (слика С19А, пратеће информације). Што је још важније, у мултидимензионалној анализи градијента удаљености (0–25, 25–50, 50–100 и 100–150 μм) око БЦАТ2+ туморских ћелија, број ЦД8+Т ћелија се постепено повећавао од близу до далеко (слика 5Ф; слика С19Б, пратеће информације). Заједно смо показали да се на нивоу људског ткива БЦАТ2 такође углавном експримира у туморским ћелијама, а БЦАТ2+ туморска ћелија има ексклузивни просторни однос са ЦД8+Т ћелијама.

Предности цистанцхе тубулоса-Антитумор
2.5. Губитак БЦАТ2 побољшава ефикасност анти-ПД-1 терапије
Са израженим негативним утицајем на ТМЕ и негативном блиском корелацијом са блокадом инхибиторне контролне тачке, изазива велико интересовање за истраживање синергистичког ефекта губитка БЦАТ2 и третмана против ПД- 1. Пре имунотерапије, модел поткожног рака бешике је направљен од стране БЦАТ2 КД и контролних линија мишјих ћелија. Затим су анти-ПД-1 терапија и контролна терапија примењене на мишеве који носе тумор (Слика 6А). У складу са својом онкогеном улогом и механизмом регулације хемокина ин витро, недостатак БЦАТ2 је инхибирао раст тумора и продужено време преживљавања ин виво, повећањем регулације хемокина повезаних са ЦД8+Т (Слика 6Б-Е; Слика С20А, пратеће информације). Са аспекта ефикасности имунотерапије, иако би монотерапија анти-ПД-1 могла делимично да смањи оптерећење тумором, заједнички третман БЦАТ2 КД и анти-ПД{16}} моноклонског антитела (маб) је показао бољи ефекат супресије тумора и добио више корист за преживљавање. На заказани дан, тумори су сакупљени и припремљени за даљу анализу. Део њих је дигестиран у једноћелијску суспензију и извршена је анализа проточне цитометрије. Са сличном популацијом леукоцита и Т ћелија (слика С20Б–Е, пратеће информације) у тумору, већи удео ЦД8+Т ћелија је приказан у групи са недостатком БЦАТ2 него у групи са негативном контролом. Слично томе, група са комбинованом терапијом имала је масовнију инфилтрацију ЦТЛ-а од групе за монотерапију (Слика 6Ф-Х). Што је још важније, индикатори цитотоксичности (ГЗМБ, ИФН-𝛾, ТНФ-𝛼 и Перфорин) ЦТЛ-а су такође били појачани у туморима миша са губитком БЦАТ2 и комбинованим третманом у поређењу са одговарајућом контролом (Слика 6Г, И-Л). Остали делови тумора су направљени у замрзнуте делове и спроведено ИФ бојење. Као што се очекивало, густина ЦД8+Т ћелија у региону од интереса (РОИ) показала је исту тенденцију са анализом проточне цитометрије (Слика 6М, Н). Ови налази су показали да недостатак БЦАТ2 на туморским ћелијама може обликовати упаљени ТМЕ и да има велику ефикасност у лечењу имунотерапије. Да би се схватила улога ЦД8+Т ћелија у синергистичком ефекту третмана, ЦД8𝛼 маб је примењен да их антагонизује код имуно компетентних мишева (слика С21А, пратеће информације) и потврдио његов ефекат исцрпљивања помоћу проточне цитометрије и ИФ (Слика С21Б, Ц, пратеће информације). Очигледно, након исцрпљивања, оптерећење тумором и време преживљавања су значајно обрнути (слика С21Д-Г, пратеће информације). Ови налази су показали да ЦД8+Т ћелије играју незаменљиву улогу у синергистичком ефекту комбиноване терапије.

Слика 4. БЦАТ2 варира обрасце експресије хемокина повезаних са ЦД8+Т-ћелијама и инхибира цитотоксични капацитет ЦТЛ. А,Б) Топлотне мапе ПроцартаПлек вишеструких имунотестова показују варијације секреције уобичајених цитокина и хемокина у БЦАТ2 ОЕ, БЦАТ2 КД и негативним контролним групама (н=3 по групи). Ц,Д) Хистограми показују нормализоване нивое експресије мРНА и концентрације протеина секреције ЦЦЛ3, ЦЦЛ4, ЦЦЛ5, ЦКСЦЛ9 и ЦКСЦЛ10 у БЦАТ2 ОЕ (лево), БЦАТ2 КД (десно) и негативним контролним групама (н {{ 15}} по групи). *п < 0.{{20}}5; **п < 0.01; ***п < 0,001. Е) Тест хемотаксе указује на различите способности хемотаксе ЦТЛ у БЦАТ2 ОЕ, БЦАТ2 КД и негативним контролним групама (н=3 по групи). *п < 0,05; **п < 0,01. Ф) Тест убијања ћелија рака посредован Т-ћелијама указује на различите способности убијања Т ћелија кокултурисаних са БЦАТ2 ОЕ, БЦАТ2 КД и негативним контролним ћелијским линијама (н=3 по групи). Г) Анализа проточне цитометрије указује на различите активности ЦД8+Т ћелија у различитим групама кокултуре (н=3 по групи).
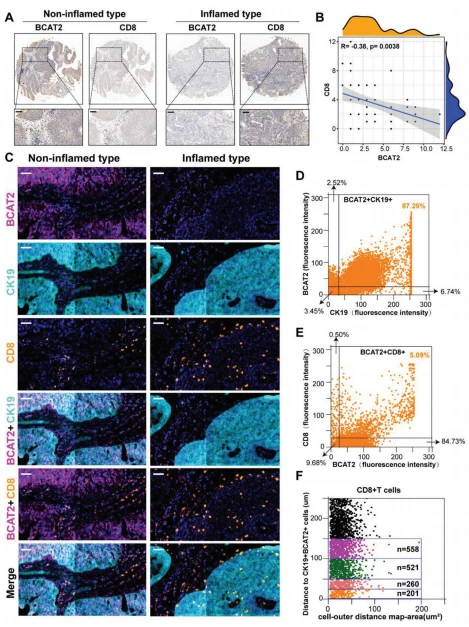
Слика 5. Валидација ексклузивних просторних односа БЦАТ2+ туморских ћелија и ЦД8+Т ћелија помоћу ТМА Ксиангиа БЛЦА кохорте. А) ИХЦ слика БЦАТ2 и ЦД8 код запаљених и неупаљених типова ТМЕ. Скала трака: 50 μм. Б) Корелација између БЦАТ2 и ЦД8 на основу њихових ИХЦ резултата у укупном ТМА. Ц) Вишебојна ИФ слика БЦАТ2, ЦК19, ЦД8 и комбиновани индекс код инфламаторних и неупаљених типова ТМЕ. БЦАТ2+ ћелија (ружичаста), ЦК19+ ћелија (цијан), ЦД8+Т ћелија (наранџаста) и језгро ћелије (плаво). Скала трака: 50 μм. Д,Е) Детаљне стопе коекспресије БЦАТ2+ЦК19+ и БЦАТ2+ЦД8+ ћелија у типичном узорку. Ф) Анализа градијента удаљености (0–25, 25–50, 50–100 и 100–150 μм) ЦД8+Т ћелија око БЦАТ2+ЦК19+ ћелија у типичним узорак.
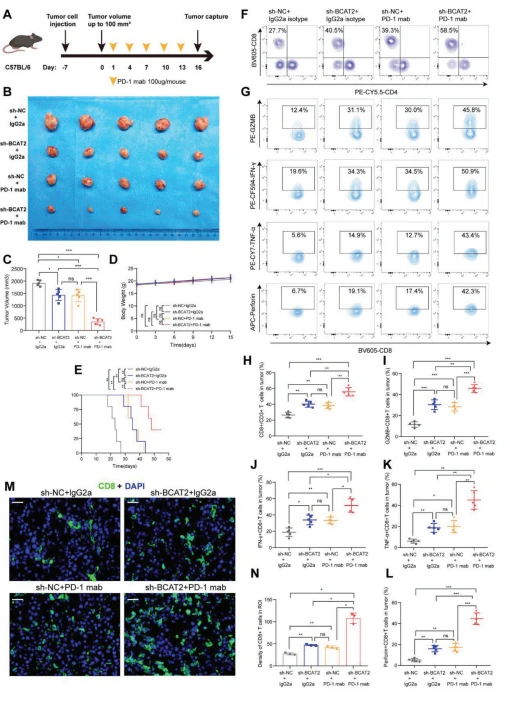
Слика 6. Губитак БЦАТ2 повећава ефикасност анти-ПД-1 терапије. А) Дијаграм тока плана лечења. Б) Сакупљени тумори различитих режима терапије (н=5 по групи). Ц–Е) Квантификација запремине тумора, телесне тежине и времена преживљавања у различитим режимима терапије (н=5 по групи). нс: нема значаја; *стр< 0.05; **p < 0.01; ***p < 0.001. F) Contour plots indicate the proportion of CD8+T cells; G) proportions of GZMB+CD8+T cells, IFN-𝛾+CD8+T cells, TNF- 𝛼+CD8+T cells, and Perforin+CD8+T cells in different therapy regimens. H) Quantified scatter plots exhibit proportion of CD8+T cells; I–L) proportions of GZMB+ CD8+T cells, IFN-𝛾+ CD8+T cells, TNF-𝛼+ CD8+T cells, and Perforin+ CD8+T cells in different therapy regimens (n = 5 per group). ns: no significance; *p<0.05; **p < 0.01; ***p < 0.001. M, N) IF image and quantified histogram show densities of CD8+T cells in different therapy regimens (n = 3 per group). Scale bar: 20 μm. CD8+T cell (green) and cell nucleus (blue). ns: no significance, *p<0.05; **p < 0.01; ***p < 0.001.
Штавише, поред туморских ћелија, мали део БЦАТ2 се такође експримује у ЦД8+Т ћелијама. Стога смо даље истражили да ли различити нивои експресије БЦАТ2 на ЦД8+Т ћелијама могу да утичу на њихове активности. Након бојења једноћелијске суспензије мишје слезине са БЦАТ2 и флуоресцентним антителима везаним за Т ћелије, упоредили смо пропорције ЦД8+ ТНФ-𝛼+Т и ЦД8+ ИФН-𝛾+Т ћелија између БЦАТ 2+ЦД8+ и БЦАТ2−ЦД8+ групе. Занимљиво је да смо открили да су пропорције биле сличне између две групе, откривајући да је активност ЦД8+Т ћелије независна од њеног нивоа експресије БЦАТ2 (слика С22А-Ц, пратеће информације).
2.6. БЦАТ2 предвиђа одговор на имунотерапију у неколико кохорти имунотерапије у стварном свету
Горе наведени налази су показали имуносупресивну улогу БЦАТ2 у ТМЕ и синергијски ефекат комбиновања губитка БЦАТ2 са анти-ПД-1 терапијом. Међутим, његов предиктивни потенцијал за ефикасност имунотерапије није јасан. Стога, у кохорти ТЦГА-БЛЦА, резултати обогаћивања путева повезаних са имунотерапијом су упоређени између група са високим и ниским БЦАТ2. Као што је приказано на слици С23А (Информације за подршку), група са ниским БЦАТ2 имала је активније гене у путевима везаним за имунотерапију, што може закључити да ниска експресија БЦАТ2 представља осетљивије стање на имунотерапију. За даљу валидацију, 58 пацијената са мишићно-инвазивним карциномом бешике (МИБЦ) који су прихватили неоадјувантну анти-ПД-1 терапију у нашој болници укључено је у Ксиангиа БЛЦА имунотерапијску кохорту. Репрезентативне ИХЦ, ИФ и ЦТ слике испитаника који су реаговали и оних који нису одговорили су имплицирали да ниво експресије БЦАТ2 има блиску везу са ефикасношћу имунотерапије – вероватније је да ће појединац са ниским нивоом експресије БЦАТ2 реаговати на имунотерапију него појединац са висок ниво експресије БЦАТ2 (Слика 7А-Ц). Штавише, ИХЦ резултат кохорте имунотерапије Ксиангиа БЛЦА и матрице експресије мРНА у кохорти ИМвигор210 указују на снажну негативну корелацију између БЦАТ2 и ПД-Л1 (Р=−{{3{{32} }}}.4, п=0.002; Р=−0.41, п < 0.001) (слика С23Б, Ц, пратеће информације). Стога смо директно упоредили ефикасност имунотерапије између група са високим и ниским БЦАТ2 у кохорти имунотерапије Ксиангиа БЛЦА и открили да је група са ниским БЦАТ2 имала значајно већи удео одговора од групе са високим БЦАТ2 (п=0.001) (Слика 7Д). Штавише, проценили смо вредности предвиђања БЦАТ2, ПД-Л1 и комбинованог индекса (БЦАТ2+ПД-Л1) на патолошки одговор на имунотерапију и открили одличне перформансе комбинованог индекса (БЦАТ2+ПД- Л1) о тачности предвиђања (слика 7Е). Инспиративно, у аспекту исхода преживљавања, група са ниским БЦАТ2 имала је дуже преживљавање без болести (ДФС) од групе са високим БЦАТ2 (п=0.032) (Слика 7Ф), што показује прогностичку вредност БЦАТ2 у БЛЦА имунотерапија. Клинички, већа је вероватноћа да ће појединци са пустињским ТМЕ имати ограничену ефикасност имунотерапије него појединци са упаљеним ТМЕ, што додатно наглашава важност индикатора предвиђања. Сходно томе, одабрали смо све појединце са пустињским ТМЕ у кохорти ИМвигор210 и спровели свеобухватну процену. У директном поређењу нивоа експресије БЦАТ2 међу различитим групама са одговором, ЦР група (одговорници) имала је значајно нижи ниво експресије БЦАТ2 од СД и ПД група (неодговарајући) (слика 7Г). Што је још важније, комбиновани индекс (БЦАТ2+ПД-Л1) је такође имао сјајне перформансе у погледу тачности предвиђања (слика 7Х). Иако није било значајне разлике у укупном преживљавању (ОС) између група са високим и ниским БЦАТ2 у пустињском типу ИМвигор210 кохорте, тенденција прогнозе је и даље била слична исходу кохорте имунотерапије Ксиангиа БЛЦА (Слика 7И). Осим ПД-Л1, микросателитска нестабилност (МСИ) је други суштински предиктор ефикасности имунотерапије. Статус поправке неусклађености (ММР)—искусан ММР (пММР) и дефицитарни ММР (дММР) одржавају високу усаглашеност са нискофреквентним МСИ (МСИ-Л) и високофреквентним МСИ (МСИ-Х).[13] Стога смо спровели свеобухватну процену свих појединаца у кохорти имунотерапије Ксиангиа БЛЦА на основу резултата бојења четири гена маркера ММР (МЛХ1, МСХ2, МСХ6 и ПМС2). Исход је открио значајно већи удео дММР (МСИ-Х) у групи са ниским БЦАТ2 у поређењу са групом са високим БЦАТ2 (п=0.02) (слика С23Д, Е, пратеће информације). Поред тога, проценили смо предиктивне вредности ММР, БЦАТ2 и комбинованог индекса (ММР+БЦАТ2) о ефикасности имунотерапије и открили да комбиновани индекс (ММР+БЦАТ2) има прихватљив учинак у погледу тачности предвиђања (Слика С23Ф, пратеће информације). Заједно, ови налази су показали да је БЦАТ2 квалификован да делује као комплементарни предиктор ефикасности БЛЦА имунотерапије. Коначно, предиктивна вредност БЦАТ2 као одговор на имунотерапију истражена је код различитих типова рака. Открили смо да су особе са високом експресијом БЦАТ2 показале значајно лошију стопу одговора (п=0.04) у кохорти ГСЕ35640 (меланом) (Слика 7Ј). Иако није било значајних разлика у стопи одговора између група са високим и ниским БЦАТ2 у ГСЕ173839 (рак дојке), ГСЕ135222 (НСЦЛЦ) и Гиде 2019 кохорти (меланом), пацијенти са ниском експресијом БЦАТ2 и даље су имали већу вероватноћу да ће имати позитиван одговор на имунотерапију (Слика 7К-М).

цистанцхе тубулоса-побољшава имуни систем
Кликните овде да видите производе Цистанцхе Енханце Иммунити
【Затражите више】 Е-пошта:cindy.xue@wecistanche.com / Вхатс Апп: 0086 18599088692 / Вецхат: 18599088692
2.7. Вредност БЦАТ2 у предвиђању молекуларног подтипа и вођењу прецизне терапије
Уз велику хетерогеност која постоји у традиционалној хистолошкој класификацији, све већи број доказа је показао да је молекуларни подтип у стању да пружи прецизнију класификацију на основу профила транскриптома у БЛЦА.[14] Штавише, са сличним имунолошким карактеристикама у истом подтипу, молекуларна класификација има велики потенцијал да предвиди ТМЕ и усмерава прецизну терапију у клиничкој пракси.[15] Кроз свеобухватну анализу различитих система молекуларних подтипова у кохорти ТЦГА-БЛЦА, открили смо да су појединци са ниском експресијом БЦАТ2 вероватније класификовани у базални подтип, праћен активираним путевима базалне диференцијације, ЕМТ диференцијације, имунолошке диференцијације, интерферонског одговора, и тако даље. Појединци са високом експресијом БЦАТ2 углавном су класификовани у луминалне подтипове, праћене активним путевима луминалне диференцијације, диференцијације уротела и Та (слика С24А, пратеће информације). Према консензусу молекуларног подтипа, базални подтип има већи ниво инфилтрације ефекторских лимфоцита и активнији ИФН-𝛾 сигнални пут од луминалног подтипа,[16] што имплицира бољу ефикасност имунотерапије. Затим је АУЦ коришћен за процену тачности предвиђања. Невероватно, осим Баилоровог подтип система (АУЦ=0.76), већина АУЦ-а је била изнад 0.90 у другим системима (слика С24Б, пратеће информације), што значи поуздану тачност предвиђања БЦАТ2 у молекуларни подтип. Да бисмо даље истражили његову улогу у предвиђању ефикасности других терапија, упоредили смо активност циљне терапије рецептора епидермалног фактора раста (ЕГФР) и путева повезаних са радиотерапијом између група са високим и ниским БЦАТ2. Са очигледним појачано регулисаним активностима, већа је вероватноћа да ће пацијенти у групи са ниским БЦАТ2 имати позитиван одговор на ЕГФР-циљну терапију и радиотерапију (слика С24Ц, пратеће информације). За повећање поузданости предвиђања о молекуларном подтипу и осетљивости на третман, осам БЛЦА кохорти (Ксиангиа БЛЦА кохорта, ГСЕ31684, ГСЕ69795, ГСЕ48075, ГСЕ128702, ГСЕ83586, ГСЕ52329{28БЛЦАб0 и једна иммунотерапија) ) били пријављен за екстерну валидацију. Уз одличну тачност предвиђања, слични налази су пронађени у овим кохортама (Слике С25–С27, пратеће информације). Хиперпрогресивна болест (ХПД) је изузетно неосетљиво стање на имунотерапију. За истраживање утицаја БЦАТ2 на ХПД, биомаркери повезани са ХПД су прикупљени из претходних студија[17] и ЦНВ биомаркера је упоређен између група са ниским и високим БЦАТ2. Осим за ЕГФР, стопе амплификације ЦНВ других ХПД-позитивних повезаних биомаркера (црвени симбол) биле су веће у групи са високим БЦАТ2, посебно МДМ2 (п=0.0116). Стопе делеције ЦНВ ХПД-негативних биомаркера (зелени симбол) биле су ниже у групи са високим БЦАТ2 (Слика С24Д, пратеће информације). Исход је показао да пацијенти са високом експресијом БЦАТ2 имају потенцијални ризик од ХПД током имунотерапије. Неоадјувантна хемотерапија (НАЦ) је кључна терапија у БЛЦА. Маркери који предвиђају одговор на НАЦ у БЛЦА прикупљени су из прегледа Буттиглиера ет ал.[18] а њихове стопе мутације су упоређене између две групе. На основу виших укупних стопа мутација биомаркера и чешћих мутација РБ1 у групи са ниским БЦАТ2, спекулисали смо да појединац са ниском експресијом БЦАТ2 има бољу ефикасност НАЦ у клиничкој пракси (слика С24Е, пратеће информације). Стога је база података Другбанк коришћена за упоређивање ефикасности неколико уобичајених режима хемотерапије између две групе и откривено је да особе са ниском експресијом БЦАТ2 имају већу вероватноћу да реагују на хемотерапију. Поред тога, група са ниским БЦАТ2 такође је показала бољу ефикасност у уобичајеним режимима имунотерапије и ЕРББ терапије. Неочекивано, пацијенти са високом експресијом БЦАТ2 вероватно добијају боље куративне ефекте у антиангиогеној терапији (слика С24Ф, пратеће информације). Заједно, појединци са ниском експресијом БЦАТ2 припадају упаљеном молекуларном подтипу, базалном подтипу, што значи позитивнији одговор на имунотерапију, хемотерапију, радиотерапију, терапију ЕГФР-циљом и терапију ЕРББ. Нажалост, пацијенти са високом експресијом БЦАТ2 имају слаб одговор на ове третмане. Међутим, антиангиогена терапија за њих може бити трачак светлости.

Слика 7. БЦАТ2 предвиђа одговор на имунотерапију у неколико кохорти имунотерапије у стварном свету. А) ИХЦ слика БЦАТ2 и ПД-Л1 између испитаника који су одговорили и оних који нису одговорили у кохорти имунотерапије Ксиангиа БЛЦА. Скала трака: 50 μм. Б) Вишебојна ИФ слика БЦАТ2 и ПД-Л1 између испитаника који су одговорили и оних који нису одговорили у кохорти имунотерапије Ксиангиа БЛЦА. Скала трака: 50 μм. БЦАТ2+ћелија (зелена), ПД-Л1+ћелија (жута) и ћелијско језгро (плаво). Ц) ЦТ слика разлике у ефикасности имунотерапије између особа са високим и ниским нивоом експресије БЦАТ2. Црвена стрелица показује на подручје тумора. Д) Укупна разлика у стопи одговора између група са високим и ниским БЦАТ2 у кохорти имунотерапије Ксиангиа БЛЦА. Е) Тачност предвиђања БЦАТ2, ПД-Л1 и комбинованог индекса (БЦАТ2+ПД-Л1) на одговор на имунотерапију у кохорти имунотерапије Ксиангиа БЛЦА. Ф) Разлика у преживљавању без болести (ДФС) између група са високим и ниским БЦАТ2 у кохорти имунотерапије Ксиангиа БЛЦА. Г) Разлике у нивоу експресије БЦАТ2 међу ЦР, ПР, СД и ПД групама у пустињском типу ИМвигор210 кохорте. *п < 0,05; нс: нема значаја. Х) Тачност предвиђања БЦАТ2, ПД-Л1 и комбинованог индекса (БЦАТ2+ПД-Л1) на одговор на имунотерапију у пустињском типу ИМвигор210 кохорте. И) Разлика у укупном преживљавању (ОС) између група са високим и ниским БЦАТ2 у пустињском типу ИМвигор210 кохорте. Ј–М) Разлике у одговору на имунотерапију између група са високим и ниским БЦАТ2 у кохортама ГСЕ35640, ГСЕ173839, ГСЕ135222 и Гиде2019.
3. Дискусија
Као кључни ензим у процесу катаболизма БЦАА, претходна истраживања су се углавном фокусирала на метаболичку улогу БЦАТ2 у болестима, као што су гојазност, дијабетес и аритмија. Ма ет ал. показали су да избацивање БЦАТ2 у масном ткиву може убрзати мркљање масног ткива и термогенезу, што доводи до смањене стопе гојазности код мишева.[19] Кроз откривање узорака крви више од 2000 особа, Герсзтен ет ал. приказао је профил метаболита повезан са дијабетесом и открио да БЦАТ2-трансформисани БЦАА играју кључну улогу у развоју болести.[20] Портеро и др. открили су да бесмислене мутације БЦАТ2п.К300*/п.К300* доводе до повишених нивоа БЦАА и изазивају аритмије код мишева.[21] Недавно је неколико студија открило да БЦАТ2 има блиску везу са раком. Леи ет ал. открили су да деградација БЦАТ2 посредована ацетилацијом може успорити развој дукталног аденокарцинома панкреаса (ПДАЦ) смањењем нивоа метаболизма БЦАА.[22] Ванг и др. сматра да ограничени ниво транскрипције БЦАТ2 доводи до смањења интрацелуларног нивоа глутамата, који стимулише фероптозу ћелија хепатома.[23] Међутим, сва постојећа истраживања су нагласила утицај БЦАТ2-посредованог катаболизма БЦАА на биолошки процес рака, а не истраживање потпуно новог механизма. У овој студији смо по први пут открили имуносупресивну улогу БЦАТ2 у ТМЕ. Примена имунотерапије редефинише лечење рака, уз одличан квалитет живота и продужено време преживљавања. Ипак, због хетерогености туморског имунолошког еколошког система, само један део појединаца добија задовољавајућу ефикасност. ТМЕ је компликован систем, састављен од туморских ћелија, имуних ћелија, стромалних ћелија и капилара.[24] Према нивоу инфилтрације ЦТЛ, ТМЕ се може класификовати на упаљене и неинфламаторне типове уопште.[25] Све већи број доказа указује да запаљен ТМЕ игра позитивну улогу у изазивању ефикасних антитуморских имуних одговора током терапије.[26] Стога смо свеобухватно анализирали више индикатора повезаних са ТМЕ и открили да висока експресија БЦАТ2 обликује неупаљени ТМЕ, са отежаним циклусом имунитета против рака, репресивним обрасцем експресије профила хемокина, молекула МХЦ и недовољним нивоом инфилтрације ТИИЦ. Поред тога, БЦАТ2 је негативно повезан са ТИС и ефекторским генима ИЦБ-а, што имплицира да особе са високом експресијом БЦАТ2 вероватније неће реаговати на имунотерапију. Да бисмо потврдили нашу хипотезу, упоредили смо стопу одговора између група са високим и ниским БЦАТ2 у кохорти имунотерапије Ксиангиа БЛЦА и другим имунотерапијским кохортама. Изненађујуће, постојале су значајне разлике у више група, што је показало да је БЦАТ2 такође способан да игра предиктор ефикасности имунотерапије, посебно у БЛЦА. Штавише, сцРНА-сек је коришћен за истраживање регулационог механизма БЦАТ2 у ТМЕ и показао је да активност сигналних путева повезаних са цитокином/хемокином, сигналног пута хемотаксе Т ћелија и сигналног пута миграције Т ћелија имају значајне негативне корелације са БЦАТ2. Као критична регулациона мрежа, цитокини и хемокини су неопходни за промет различитих имуних ћелија у ТМЕ. Систем хемокина има четири суперфамилије: Ц, ЦЦ, ЦКСЦ и ЦКС3Ц, са значајном редундантношћу упаривања лиганада и рецептора.[27] Цитокин се може поделити на потфамилије Тх1, Тх2 и Тх17 на основу њихове биолошке функције.[28] Кроз њихово лучење различитих нивоа, борба између туморских ћелија и имуних ћелија је довољна да се репрограмирају карактеристике ТМЕ.[29] Без обзира на то, међу великим бројем цитокина и хемокина, неопходно је издвојити највреднији кластер. Користећи 34-панел за имунотестирање цитокина и хемокина, открили смо да су хемокини, укључујући ЦЦЛ3, ЦЦЛ4, ЦЦЛ5, ЦКСЦЛ9 и ЦКСЦЛ10, у снажној негативној корелацији са експресијом БЦАТ2 у ћелијама рака бешике код људи и миша. Добро је познато да су ЦКСЦЛ9 и ЦКСЦЛ10 одговорни за регрутовање ЦД8+Т ћелија у ТМЕ.[30] Да бисмо утврдили функцију ЦЦЛ3, ЦЦЛ4 и ЦЦЛ5, потражили смо претходна истраживања. Харлин ет ал. је користио низове протеина и кПЦР да би открио да је повећање регулације ЦЦЛ3, ЦЦЛ4 и ЦЦЛ5 способно да промовише миграцију ЦД8+Т ћелија у меланом.[31] Номан и др. открили да повећана популација секреције ЦЦЛ5 помаже у успостављању проинфламаторног ТМЕ тако што се ЦТЛ транспортују у ткиво колоректалног карцинома.[32] Преко ИХЦ и РНА-секве профила хемокина у више кохорти, Ромеро ет ал. показали су да ЦЦЛ4 и ЦЦЛ5 имају јаку повезаност са нивоом инфилтрације ЦД8+Т ћелија код рака панкреаса.[33] Стога смо сматрали да су хемокини повезани са ЦД8+Т-ћелијама главни хемокини регулисани БЦАТ2 код рака мокраћне бешике. Иако смо показали снажне негативне корелације између БЦАТ2 и хемокина повезаних са ЦД8+Т ћелијама, основни регулаторни механизам између њих још увек треба даље да се истражи. Студија Петерсона ет ал. показао да активација сигналног пута МАП киназе (МАПК) може индуковати производњу ЦКС3ЦЛ1.[34] Ксу ет ал. открили су да ЈАК-СТАТ сигнални пут регулише лучење хемокина повезаних са Тх1-, узрокујући смањен ниво инфилтрације ТИЛ-а.[35] Недавно су Пенг ет ал. открили су да деметилаза ЈМЈД3 може инхибирати експресију хемокина повезаних са ЦД4+Тћелијама и смањити ниво инфилтрације цитотоксичних Т ћелија у ТМЕ, што представља кључну улогу епигенетске модификације у регулисању експресије хемокина.[36] Маио и др. такође је открио да епигенетски инхибитор, хистон деацетилаза 1, има велики капацитет да потисне експресију ЦКСЦЛ8 путем активације сигналног пута нуклеарног фактора-𝜅Б (НФ-𝜅Б).[37] Штавише, као симболи метаболизма туморских ћелија, аеробне гликолизе и реактивних врста кисеоника (РОС), што указује на одличне перформансе у индуковању експресије ЦКСЦЛ8 и ЦКСЦЛ14 подизањем активности сигналних путева НФ-𝜅Б и протеина 1 активатора транскрипционог фактора (АП{{93) }}).[38] Занимљиво је да су у нашој студији сигнални путеви НФ-𝜅Б, СТАТ и МАПК значајно обогаћени између високих и ниских ћелијских линија БЦАТ2 (слика 3К; слика С16А, Б, пратеће информације). Стога ћемо, у комбинацији са горе наведеним студијама, даље истраживати кључни молекул у механизму регулације хемокина повезаних са БЦАТ2 и ЦД{100}}Т. Ограничена објективна стопа одговора монотерапије са ИЦБ-ом подстиче појаву стратегије комбиноване терапије. За претварање неимунолошког ТМЕ у имунолошки ТМЕ, Волцхок ет ал. применио котретман ниволумаба (анти-ПД-1 терапија) и ипилимумаба (анти-ЦТЛА-4 терапија) код пацијената са меланомом и открио охрабрујући лековити ефекат, који се приписује синхроном појачаном пражњењу, активацији и убијању ЦТЛ-а .[39] Више од комбиновања са другом врстом ИЦБ-а, хемотерапија плус имунотерапија је алтернативна терапија. Као режим прве линије лечења узнапредовалог уротелног карцинома, неколико студија је открило да је хемотерапија заснована на цисплатину способна да обликује проинфламаторни ТМЕ повећањем нивоа експресије МХЦ И класе на дендритским ћелијама и оштећењем МДСЦ-а и Трег-ова.[40] Случајно, Хомма ет ал. открили су да други уобичајени лек за хемотерапију за рак мокраћне бешике — гемцитабин — може да побољша количину инфилтрације ЦД{110}Т ћелија и да наруши имуносупресивне имуне ћелије у ТМЕ.[41] У нашем претклиничком експерименту на животињама, истовремени третман губитка БЦАТ2 и анти-ПД-1 маб показао је изразитију антитуморску ефикасност у поређењу са монотерапијом анти-ПД-1 маб код имунокомпетентних мишева, што пружа иновативни третман стратегија за пацијенте отпорне на ИЦБ. У међувремену, кроз анализу проточне цитометрије и ИФ, показали смо да уништавање БЦАТ2 не само да регрутује више популације ЦТЛ-а у ТМЕ, већ и повећава активност убијања ЦТЛ-а. Слично, Пенг ет ал. открили су да прекомерна експресија ЛГАЛС2 смањује количину инфилтрирајућих ЦТЛ-ова као и цитотоксичних биомаркера код мишева који носе рак дојке.[42] Ианг ет ал. илустровано да је ЦКСЦЛ13 способан да појача одговор на имунотерапију код мишјих модела рака јајника повећањем нивоа инфилтрације ЦД8+Т ћелија и нивоа секреције ГЗМБ, ИФН-𝛾 и ИЛ-2.[43] Пратећи снажнији антиканцерогени одговор, комбинована терапија додатно ремети постојећу повратну петљу имунолошког система, што вероватно доводи до озбиљних нежељених ефеката. Према обрасцу експресије БЦАТ2 на нивоу сиРНА, специфично израженом у туморским ћелијама, а не у имуним ћелијама и ендотелним ћелијама, можемо прелиминарно закључити да је мања вероватноћа да ће губитак БЦАТ2 или инхибитор БЦАТ2 довести до страшних штетних ефеката. Међутим, још увек треба истражити оптималну дозу и време интервала БЦАТ2 инхибитора и анти-ПД-1 маб у комбинованој терапији.
За вођење прецизне терапије код појединаца, повезали смо БЦАТ2 са молекуларним подтипом БЛЦА и критичним биомаркерима различитих терапија. На основу веродостојних предвиђања у више група, открили смо да су имунотерапија, хемотерапија, радиотерапија и ЕФГР-циљна терапија погодне за пацијенте са ниском експресијом БЦАТ2. Антиангиогена терапија се препоручује за пацијенте са високом експресијом БЦАТ2. За разлику од компликованог процеса детекције молекуларних подтипова, БЦАТ2 је преносиви предиктор за прецизну терапију. Неизбежно, постоје нека ограничења у нашим студијама. Прво, величине узорка и време праћења кохорте Ксиангиа БЛЦА и Ксиангиа БЛЦА имунотерапије биле су ограничене. Морамо додатно повећати величину узорка и наставити стандардизовано праћење. Друго, као кохорта у стварном свету, Ксиангиа БЛЦА имунотерапијска кохорта је садржала различите опције операције које су вероватно изазвале потенцијалну пристрасност. Даље ћемо повећати нашу кохорту и спровести анализу подгрупа на основу исте опције операције. Треће, кооперативни ефекат комбиноване терапије ин виво треба даље да се потврди коришћењем системске примене БЦАТ2 инхибитора. Укратко, као имуносупресивна улога у ТМЕ БЛЦА, БЦАТ2 је нова мета у комбинованој терапији ИЦБ-а и тачан биомаркер прецизне терапије.

Предности цистанцхе тубулоса- ојачати имуни систем
4. Експериментална секција
cohort: As illustrated in a previous study,[44] 56 eligible BLCA patients accepted surgical treatment (TURBT (transurethral resection of bladder tumor) or radical cystectomy) in Xiangya Hospital. All the samples were conducted through high throughput RNA sequencing (RNA-seq) to acquire transcriptome information. Then, data on RNA-seq, clinicopathologic features, and follow-up information of these patients were utilized to construct the Xiangya BLCA cohort (Table S1, Supporting Information). Xiangya BLCA immunotherapy cohort: 58 MIBC patients were included in the Xiangya BLCA immunotherapy cohort. All the samples were obtained by diagnostic TURBT before the implementation of neoadjuvant anti-PD-1 therapy. After at least two cycles standard neoadjuvant immunotherapy (NAI), TURBT, or radical cystectomy (RC) were conducted based on treatment response and patients' willingness. 17 individuals with complete response (CR) and 16 individuals with partial response (PR) were classified into responders, 17 individuals with stable disease (SD), and 8 individuals with progressive disease (PD) were classified into nonresponders. The detailed clinicopathological characteristics are listed in Table S2 (Supporting Information). Xiangya scRNA cohort: Three samples of muscle-invasive bladder cancer were implemented scRNA-seq, constituting the Xiangya scRNA cohort. Detailed preparation of single-cell suspension, data transformation, and cell quality control have been elaborated in previous articles.[45] In simple terms, three tumor samples were loaded on a Chromium Single Cell Controller instrument (10×Genomics, USA) to produce single-cell gel beads in suspension. Seurat R package was applied to transform the count matrix into Seurat format. Four standards were set up for excluding low-quality cells in the matrix: unique molecular identifier (UMI) amount < 1000, gene quantity < 200, log10GenesPerUMI < 0.70, and mitochondrial-originated UMI counts > 20%. After integrating the samples based on the top 3000 variable traits, principal component analysis (PCA) and the Findclusters algorithm were employed to identify main cell clusters. Based on the level of copy number variation (CNV) in epithelial cells, malignant bladder carcinoma cells were selected from clusters. The study plan was approved by the ethics committee of Xiangya Hospital, Central South University (Item number: 2021101175). All the specific men were collected complying with informed consent rights. The Cancer Genome Atlas (TCGA) Database: RNA expression matrix, survival outcome, and CNV of 33 types of carcinomas were acquired from the UCSC Xena database. Log2 transformation was employed to normalize RNA-seq data and the GISTIC algorithm was applied to process CNV data. Gene Expression Omnibus (GEO) Database: Transcriptome data of 1740 samples from nine BLCA cohorts: GSE31684 (93 samples), GSE48075 (142 samples), GSE69795(61 samples), GSE32894 (308 samples), GSE48276 (116 samples), GSE83586 (307 samples), GSE86411 (132 samples), GSE52329 (20 samples), GSE87304 (305 samples), and GSE128702 (256 samples) were obtained from GEO database. RNA-seq data of three immunotherapy cohorts: GSE35640 (14 samples, melanoma, and MAGE-A3 therapy), GSE173839 (105 samples, breast cancer, and anti-PD-L1 therapy), and GSE135222 (27 samples, nonsmall cell lung carcinoma (NSCLC), and anti-PD-1/PD-L1 therapy) were downloaded from GEO database. Single-cell transcriptomic characterization of two BLCA scRNA cohorts: GSE135337 (8 samples) and GSE145137 (3 samples) was obtained from the GEO database. Data processing was similar to the Xiangya siRNA cohort. Other Databases: RNA expression matrix and clinicopathologic characteristics of immunotherapy cohorts: IMvigor210 (348 samples, bladder cancer, and anti-PD-1 therapy) and Gide2019 (58 samples, melanoma, anti-PD-1, or anti-CTLA-4 therapy) were collected from http://researchpub.gene.com/IMvigor210CoreBiologies and TIDE database (http://tide. dfci.harvard.edu/). Data of RNA-seq and clinical characteristics of a BLCA cohort—E-MTAB-1803 (85 samples)—was downloaded from ArrayExpress (https://www.ebi.ac.uk/arrayexpress/). BCAT2 expression levels in various types of cancer cell lines were downloaded from the Cancer Cell Line Encyclopedia (CCLE) database. Specific clinicopathologic and follow-up information from public databases were listed in our previous studies.[44,46] Assessment of Immunological Identity of TME in BLCA: As depicted in our previous study,[44] a comprehensive evaluation of the immunological trait of TME in BLCA was summarized. The tracking tumor immunophenotype (TIP) website (http://biocc.hrbmu.edu.cn/TIP/) was used to assess the activities of cancer immunity cycles, which reflected the effectiveness of antitumor immunity. It is separated into seven concrete steps: release and presentation of tumor antigen (steps 1 and 2), startup and activation of effector T cells (step 3), trafficking and assisting diverse immune cells into TME (steps 4 and 5), recognition and killing cancer cells (steps 6 and 7).[47] Six independent algorithms (TIMER, CIBERSORT, CIBERSORT-ABS, MCP-COUNTER, TISIDB, and XCELL) were employed to calculate the infiltration levels of tumor-infiltrating immune cells (TIICs).[48] Furthermore, effector genes of immune cells, ligands and receptors of chemokines, major histocompatibility complex (MHC) molecules, and immunostimulators were collected for evaluating immunological characteristics of TME multi-dimensionally. T cell-inflamed score (TIS) and markers of ICB were utilized to assess the host sensitivity state to immunotherapy.[49] Enrichment Pathways Analysis: Limma R package with empirical Bayesian function was employed to screen differentially expressed genes (DEGs) between high and low expression of BCAT2 in the RNA expression matrix.[50] Screening thresholds were |log (fold change) (log FC) |>1.5 и прилагођена п-вредност < 0.05. Анализе онтологије гена (ГО) и Кјото енциклопедије гена и генома (КЕГГ) су спроведене на идентификованим ДЕГ помоћу ЦлустерПрофилер Р пакета.[51] Сеурат Р пакет са Финдмаркер алгоритмом је примењен за израчунавање нивоа експресије БЦАТ2 на епителним ћелијама у сцРНА-секв. На основу различитог рангирања експресије гена према вредности промене пута (ФЦ), примењена је анализа обогаћивања генског скупа (ГСЕА) за процену позитивних и негативних корелација. Идентификација имунолошки повезаних ДЕГ-а: ЕСТИМАТЕ Р пакет је коришћен за израчунавање имунолошких и стромалних резултата у ТЦГА-БЛЦА кохорти. У складу са средњом вредношћу два резултата и нивоом експресије БЦАТ2, Лимма Р пакет је примењен за идентификацију позитивних/негативних ДЕГ-ова повезаних са имунитетом и стромом. Венов дијаграм Р пакет је коришћен да се узме пресек различитих група и да се одреде заједнички ДЕГ. Класификација појединаца који користе молекуларне подтипове БЛЦА: Седам молекуларних подтипова БЛЦА (УНЦ, Баилор, ТЦГА, МДА, Лунд, ЦИТ и Цонсенсус) су широко примењене у клиничкој пракси за процену карактеристика ТМЕ и ефикасности различитих терапија.[52] Узимајући у обзир сложену интеракцију различитих подтипова, заједнички смо их поделили у две главне категорије — базални и луминални подтип.[16] Р пакети Цонсенсус МИБЦ и БЛЦАсубтипинг су коришћени за класификацију појединаца у специфичне подтипове. Након нормализације, површина испод РОЦ криве (АУЦ) је коришћена за процену поузданости БЦАТ2 у предвиђању класификације. Процена прецизне терапије пацијената: Као што је илустровано у нашој претходној студији, [53] низ критичних генских потписа, који могу предвидети ефикасност хемотерапије, радиотерапије, циљане терапије и имунотерапије, прикупљен је из различитих студија и база података.[16, 54] СсГСЕА алгоритам је коришћен за израчунавање резултата обогаћења генских потписа.[55] Ћелијске линије: Ћелије рака људске бешике (Т24) и ћелије рака бешике миша (МБ49) су купљене од Процелл Лифе Сциенце & Тецхнологи (Вухан, Кина) и Меисен ЦТЦЦ (Јинхуа, Кина), респективно. Одржавани су у медијуму ДМЕМ (БасалМедиа, Кина) са 10% феталног говеђег серума (ФБС) (БИ, Израел), 1% пеницилина и стрептомицина (НЦМ Биотецх, Кина) и култивисани у инкубатору на 37 степен температуре која садржи 5% ЦО2. Конструкција и РНА-сек стабилних трансфекционих ћелија: Лентивирусни вектор пленти-БЦАТ2-флаг-пуромицин (ГВ341) је дизајнирао и конструисао ГенеЦхем (Шангај, Кина) за стабилну БЦАТ2-претерану експресију (БЦАТ2 ОЕ) ћелијска линија и њена негативна контрола (ое-вектор). Поред тога, БЦАТ2- кратка шнала РНК (схРНА) је клонирана у ГВ112-лентивирусни вектор од стране ГенеЦхем-а (Шангај, Кина) за стабилну ћелијску линију БЦАТ2-кок-довн (БЦАТ2 КД) . Циљне секвенце схРНА су наведене у табели С3 (Информације за подршку). Затим су рекомбинантни БЦАТ2 лентивируси трансфектовани у објективне ћелије према упутствима произвођача. 2 уг мЛ-1 пуромицина (Амерсцо, САД) је коришћено за филтрирање стабилних трансфекционих ћелија током три дана. Вестерн блот и квантитативни ПЦР са реверзном транскрипцијом (кРТ-ПЦР) су примењени да би се потврдила ефикасност трансфекције. На крају је изабрана стабилна трансфекциона ћелија са најбољом ефикасношћу за РНА-сек и даље експерименте. Три дуплирана узорка сваке ћелијске линије послата су на БГИ РНА-сек платформу (Шенжен, Кина). Критеријуми за одабир ДЕГ-а и анализу путева обогаћивања били су исти као што је приказано у 2.3 (анализе путева обогаћивања). ПроцартаПлек вишеструки имуноесеји за откривање нивоа секреције хемокина и цитокина ћелијских линија рака: хумани ПроцартаПлек имунотест панел (Мачка: ЕПКС340-12167-901) и миш ПроцартаПлек имунотест панел (Мачка: ЕПКС{4}}{3}) купљени су од ТхермоФисхер Сциентифиц-а (Масачусетс, САД) за откривање нивоа експресије протеина од више од 30 кључних хемокина и цитокина у ћелијама рака стабилне трансфекције. Укратко, супернатанти ћелијске културе су сакупљени са 24- плоче бунара и центрифугирани да би се уклониле ћелије и остаци ћелија. Затим су супернатанти за бистрење инкубирани са перлама у панелу према упутствима произвођача. Луминек платформа за детекцију (ТхермоФисхер Сциентифиц, САД) коришћена је за квантитативну анализу сваког узорка. Неоткривени индикатори су искључени из анализе. кРТ-ПЦР: Укупна РНК је изолована из ћелија са комплетом за изолацију укупне РНК ћелија и комплетом за изолацију укупне РНК животиња (Форегене, Кина) у складу са протоколом произвођача. цДНК је синтетизована коришћењем УеИрис ИИ РТПЦР система за прву ланчану цДНК синтезу (УС Евербригхт, Кина). кРТПЦР је изведен коришћењем СИБР Греен кПЦР Мастер Мик-а (УС Евербригхт, Кина) на ЦФКС Цоннецт систему (Био-Рад, САД). ГАПДХ је коришћен као интерна стандардна контрола. Прајмере је дизајнирао и синтетизовао Сангон Биотецх (Шангај, Кина), а детаљне секвенце прајмера су наведене у табели С4 (Информације за подршку). ЕЛИСА: Концентрације ЦЦЛ3, ЦЦЛ4, ЦЦЛ5, ЦКСЦЛ9 (МИГ) и ЦКСЦЛ10 (ИП10) у супернатантима културе ћелија рака мокраћне бешике одређене су помоћу хуманих ЕЛИСА комплета према протоколу произвођача (Протеинтецх, САД). За мерење вредности оптичке густине (ОД) коришћен је биотехнолошки читач микроплоча (ТхермоФисхер Сциентифиц, САД). С обзиром на огромну разноликост нивоа секреције између различитих цитокина и хемокина, спровели смо стандардизацију података (лог 2 трансформација) пре анализе. Вестерн Блот: РИПА пуфер (НЦМ биотецх, Кина) додат са 1% коктелом инхибитора протеазе (НЦМ биотецх, Кина) је коришћен за лизу ћелија. БЦА Протеин Ассаи Кит (НЦМ биотецх, Кина) је коришћен за одређивање концентрације протеина. Након што су пребачени на ПВДФ мембране, ћелијски протеини су сукцесивно инкубирани са примарним антителима и специфичним ХРП-коњугованим секундарним антителима. Сигнале је хватао КСРС систем за снимање (Био-Рад, САД). Примарна антитела укључују анти-БЦАТ2 антитело (Мачка: аб95976, Абцам, САД) и анти-ГАПДХ антитело (Мачка: аб8245, Абцам, САД). Секундарна антитела укључују ХРП козји анти-зечји ИгГ (Мачка: 7074, технологија ћелијске сигнализације, САД) и ХРП козји анти-мишји ИгГ (Мачка: 7076, технологија ћелијске сигнализације, САД). Тест убијања ћелија рака посредованим лимфоцитима Т и тест кокултуре: Узорци крви су прикупљени од 10 здравих давалаца у нашој болници. Према упутствима произвођача, за екстракцију мононуклеарних ћелија периферне крви (ПБМЦ) коришћено је градијентно центрифугирање од стране Лимпхопреп-а (Цат: 07851, СтемЦелл Тецхнологиес, САД). Поред тога, пуфер за лизу црвених крвних зрнаца (Соларбио, Кина) је коришћен за уклањање црвених крвних зрнаца помешаних са ПБМЦ. Да би се активирале Т ћелије, ПБМЦ су култивисане у медијуму ДМЕМ (Гибцо, САД), додајући рекомбинантни хумани ИЛ- 2 (10 нг мЛ−1, Цат: 202-1Л-050, Р&Д , САД) и ИммуноЦулт Хуман ЦД3/ЦД28/ЦД2 активатор Т ћелија (25 μЛ мЛ-1, Цат: 10970; СТЕМЦЕЛЛ Тецхнологиес, САД) током 1 недеље. У односу 1:5, ћелије рака мокраћне бешике (БЦАТ2-ОЕ, БЦАТ2-КД и њихове негативне контроле) су култивисане заједно са активираним Т ћелијама у ДМЕМ медијуму са анти-ЦД3 антителом (100 нг мЛ−1, Тхермо Сциентифиц, САД) и ИЛ-2 (10 нг мЛ−1) од једног донатора у 12- плочи са бунарима током 72 х. Затим су Т ћелије сакупљене за анализу проточне цитометрије. Детаљна стратегија гејта анализе протока је приказана на слици С28 (Информације за подршку). Преостале ћелије рака су обојене кристално љубичастом и измерене су ОД вредности на 570 нм читачем микроплоче. Антитела за анализу проточне цитометрије укључују Зомбие Акуа Фикабле Виабилити Кит (Цат: 423101, Биолегенд, САД), АПЦ/ Ци7 анти-хумани ЦД45 (Мачка: 368516, Биолегенд, САД), Пацифиц Блуе анти-хумано ЦД3 антитело (Цат: 300329, Биолегенд, САД), ПерЦП/Ци5.5 анти-хумано ЦД4 антитело (Цат: 317427, Биолегенд, САД), ФИТЦ анти-хумано ЦД8а антитело (Мачка: 301006, Биолегенд, САД), ПЕ/Даззле 594 анти-хумано ТНФ- 𝛼 Антитело (Мачка: 502946, Биолегенд, САД) и Бриллиант Виолет 711 анти-хумано ИФН- 𝛾 антитело (Мачка: 502540, Биолегенд, САД). Тест хемотаксе: Тест хемотаксе је примењен у 24-трансвелл плочу са 3 μм пречника језгра (Цорнинг, САД). Људски ЦД8+Т Целл Исолатион Кит (Цат: 480012, Биолегенд, САД) је коришћен за екстракцију ЦД{135}}Т ћелија из ПБМЦ. 1 × 10⁵ изолованих ћелија у запремини од 200 μЛ је додато у горњу комору и 600 μЛ супернатаната различитих стабилних трансфекционих ћелијских линија је додато у доњу комору. После инкубације од 6 х на 37 степени, ћелије су мигрирале у доњу комору и сакупљене су и избројане проточном цитометријом. Тестови пролиферације, миграције и инвазије ћелија: Тест формирања колонија плоча је коришћен за процену способности пролиферације ћелија. БЦАТ2-ОЕ, БЦАТ2-КД и ћелије рака мокраћне бешике негативне контроле су култивисане у 6-плоче са бунарима по бунарчићу. Након инкубације у влажној атмосфери од 37 степени током 2 недеље, колоније су фиксиране и обојене параформалдехидом и кристално љубичастом, респективно. Трансвелл коморе са поликарбонатним мембранским уметцима од 8,0 μм (Цорнинг, САД) коришћене су за процену капацитета миграције ћелија и инвазије ин витро. 1 × 10⁵ стабилних трансфектованих ћелија суспендовано је у медијуму без серума и засејано у горњу комору са или без Матригела (Цорнинг, САД), за одвојено испитивање инвазије и миграције. После инкубације током 24 х (тест миграције) и 48 х (тест инвазије), ћелије које су се прилепиле на доњу површину мембране су фиксиране и обојене. Ћелије које су остале у горњој комори уклоњене су брисевима. Пет насумичних поља је одабрано под микроскопом за израчунавање броја ћелија. Имунофлуоресценција (ИФ) и имунохистохемија (ИХЦ): Вишебојни ИФ на ТМА Ксиангиа БЛЦА кохорте и Ксиангиа БЛЦА имунотерапије кохорте је имплементиран помоћу вишеструког флуоресцентног имунохистохемијског комплета за бојење (Абсин, Кина). Укратко, након депаравања, рехидратације и реновирања антигена, ТМА је инкубиран са примарним антителима и секундарним антителима што подстиче везивање различитих луциферина појачавањем тирамидног сигнала (ТСА). Након брисања невезаних антитела цитратним пуфером, процес инкубације је поновљен два пута. ДАПИ је коришћен да би се супротставило бојењу ћелијских језгара, а слике су скениране на Паннорамској МИДИ платформи (3ДХИСТЕЦХ, Мађарска). Примарна антитела на ТМА кохорте Ксиангиа БЛЦА укључују анти-БЦАТ2 (Мачка: аб95976, Абцам, САД), анти-цитокератин 19 (ЦК19) (Мачка: аб52625, Абцам, САД), анти-ЦД8 (Мачка: аб237709, Абцам, САД ) и ДАПИ (Инвитроген, САД). Секундарна антитела и флуорохром на ТМА кохорте Ксиангиа БЛЦА укључују ХРП козји анти-зечји/миш ИгГ, Абсин 520 ТСА Плус, Абсин 570 ТСА Плус, Абсин 650 ТСА Плус (абс50012, Абсин). Примарна антитела на ТМА имунотерапијске групе Ксиангиа БЛЦА укључују анти-БЦАТ2 (Мачка: аб95976, Абцам, САД), анти-ПД-Л1 (Мачка: аб213524, Абцам, САД) и ДАПИ (Инвитроген, САД). Секундарна антитела и флуорохром на ТМА кохорте имунотерапије Ксиангиа БЛЦА укључују ХРП козји анти-зечји/мишји ИгГ, Абсин 520 ТСА Плус и Абсин 650 ТСА Плус (абс50012, Абсин). ИФ на мишјим туморским ткивима је инкубиран са примарним антителом - анти-ЦД8 (Цат: 372902, БиоЛегенд, САД) - и секундарним антителом - анти-мишјим коњугатом боје Алека Флуор 488 (Инвитроген, САД). ДАПИ је примењен на визуелизовано ћелијско језгро. Пет насумичних поља је одабрано под микроскопом да би се израчунали позитивни бројеви ћелија за бојење. ИХЦ на ТМА кохорте Ксиангиа БЛЦА и Ксиангиа БЛЦА имунотерапије кохорте је спровео СП-9000 Кит (ЗСГБ-БИО, Кина). Након преузимања и блокирања антигена, примарна антитела и секундарна антитела су инкубирана са туморским ткивима. Затим је диаминобензидин (ДАБ) примењен на циљне антигене боје. Смеђи сигнал се сматрао позитивним бојењем. Оцена интензитета бојења (одсутан=0, слаб=1, умерен=2 и јак=3) множење резултата позитивног процента (без бојења=0, бојење ћелија мање од 25%=1, 25%–50% ћелија за бојење=2, 50%–75% ћелија за бојење=3 и бојење ћелија више од 75%=4) је крајњи ИХЦ резултат узорака. Резултати БЦАТ2/ЦД8/ПД-Л1 мањи од шест поена су класификовани као ниска експресија, а њихови резултати већи или једнаки шест поена су класификовани као висока експресија. За процену статуса појединца на ММР, сви узорци из групе имунотерапије Ксиангиа БЛЦА процењени су на основу резултата бојења четири гена маркера ММР (МЛХ1, МСХ2, МСХ6 и ПМС2). Као што је приказано у претходним студијама, [56] када су сва четири маркерска гена била позитивно обојена, појединац је означен као ММР. Када је било који од четири маркерска гена имао негативно бојење, појединац је означен као дММР. Два независна патолога су позвана да спроведу процену. Антитела укључују: анти-БЦАТ2 (Мачка: аб95976, Абцам, САД), анти-ЦД8 (Мачка: аб4055, Абцам, САД), анти-ПД-Л1 (Мачка: аб213524, Абцам, САД), анти-МЛХ1 (Мачка: А4858, Абцолонал, Кина), анти-МСХ2 (Цат: А22177, Абцолонал, Кина), анти-МСХ6 (Цат: А16381, Абцолонал, Кина), анти-ПМС2 (Цат: А4577, Абцолонал, Кина) и ХРП Гоат Анти - ИгГ зеца/миша (ЗСГБ-БИО, Кина). ТиссуеФАКСС панорамске анализе просторне интеракције у ТМЕ: За процену просторне интеракције БЦАТ2+ малигних ћелија и ефекторских Т ћелија, ТиссуеФАКСС панорамска платформа (Тиссуе Гностицс, Аустрија) је коришћена за скенирање и полуаутоматску анализу објективних ћелија обојених вишебојним ИФ ТМА из Ксиангиа БЛЦА кохорте. ТМА је састављен од биопсија језгра од 1,5 мм из узорака туморског ткива уграђених у парафин. Детаљније, БЦАТ2+ ћелије, малигне ћелије и ЦД{241}}Т ћелије су обојене специфичним примарним антителима и секундарним антителима. ДАПИ (Инвитроген, САД) је коришћен за бојење ћелијског језгра. Детаљни кораци су описани у студији Макаревића ет ал.[57] Укратко, према интензитетима флуоресценције различитих индикатора и физичким својствима ћелија, позитивне ћелије су означене и квантификоване. Још важније, просторне дистрибуције ЦД8+Т ћелија око БЦАТ2+ЦК19+ ћелија су приказане дијаграмима расејања на основу просторне удаљености (0–25, 25–50, 50– 100 и 100–150 μм). Два искусна патолога су позвана да провере исход одлуке панорамске платформе ТиссуеФАКСС. Експерименти на животињама: Женке мишева Ц57БЛ/6 (6–7 недеља) су добијене са Одељења за лабораторијске животиње Универзитета Централ Соутх. Све операције на мишевима су проверене и одобрене од стране Комитета за негу и употребу животиња болнице Ксиангиа, Централ Соутх Университи (број артикла: 2021101175). Пре свега, да би се истражила улога БЦАТ2 на раст тумора ин виво, ћелије БЦАТ2 КД МБ49 (5 × 10⁵) и његове контролне ћелије у запремини медијума од 100 μЛ су субкутано убризгане у десни бок мишева. Штавише, након успешног конструисања модела поткожног тумора (запремина тумора до 100 мм3), 100 уг ИнВивомАб антимишјег ПД-1 (Мачка: БЕ0146, Биокцелл, САД) и контрола изотипа ИгГ2а (Мачка: БЕ0089, Биокцелл, САД) интраперитонеално су убризгани по мишу, за процену синергистичког ефекта губитка БЦАТ2 и анти-ПД-1 терапије. Анти-ПД-1 терапија је примењивана на мишевима свака 3 дана и трајала је до пет курсева. Даље, за процену да ли кооперативни ефекат третмана зависи од ЦД8+Т ћелија. Пратећа комбинована терапија, 100 уг ИнВивоПлус анти-мишје ЦД8𝛼 (Мачка: БП0117, Биокцелл, САД) и контрола изотипа ИгГ2б (Мачка: БП0090, Биокцелл, САД) коришћено је за исцрпљивање ЦД8+Т ћелија код мишева. Телесна тежина мишева је бележена свака три дана. На заказани датум, тумори су сакупљени, измерени и припремљени за анализу проточне цитометрије, ИФ бојење и кРТ-ПЦР. За истраживање интеракције између нивоа експресије БЦАТ2 на ЦД8+Т ћелијама и активности ЦД8+Т ћелија, слезине женки Ц57БЛ/6 мишева (6–7 недеља) без тумора су биле дисоциран и припремљен за једноћелијску суспензију за даљу анализу. Анализа проточне цитометрије: Мишји тумори су млевени и дигестирани у једноћелијску суспензију помоћу колагеназе ИВ (Цат: Ц5138, Сигма, УСА), хијалуронидазе (Цат: Х3506, Сигма, САД) и ДНазе И (Мачка: ДН25, Сигма, САД ). За филтрирање нечистоћа коришћени су ћелијски филтери од 70 μм (БИОФИЛ, Кина), а коришћен је бројач ћелија (Цоунтстар, Кина) за добијање (3–5) × 106 ћелија у сваком узорку. Након идентификације живих ћелија коришћењем Зомбие Акуа Фикабле Виабилити Кит (Мачка: 423101, Биолегенд, САД) и блокирања Фц рецептора анти-мишјим ЦД16/32 антителом (Мачка: 156603, Биолегенд, САД), антигени ћелијске мембране су обојени АПЦ-Ци7 анти-миш ЦД45 (Мачка: 103116, Биолегенд, САД), БВ421 анти-миш ЦД3 (Мачка: 100341, Биолегенд, САД), БВ605 анти-миш ЦД8а (Мачка: 100744, Биолегенд, САД) и ПерЦПЦи5.5 анти-миш ЦД4 (Мачка: 100540, Биолегенд, САД). Затим је биосциенце Фокп3/Сет пуфера за бојење транскрипционог фактора (Цат: 2400632, Инвитроген, САД) коришћен за фиксирање и пермеабилизацију ћелијске и нуклеусне мембране. Антигени повезани са цитотоксичним ефектом обојени су ПЕ анти-хуманим/мишјим Гранзимом Б (Мачка: 372208, Биолегенд, САД), ПЕ-Ци7 анти-мишјим ТНФ-𝛼 (Мачка: 506324, Биолегенд, САД), ПЕ-Даззле 594 анти- миш ИФН-𝛾 (Мачка: 505846, Биолегенд, САД), АПЦ анти-миш Перфорин (Мачка: 154304, Биолегенд, САД). Стратегија гајтинга анализе проточне цитометрије приказана је на слици С29 (Информације за подршку). Анти-хумани/мишји БЦАТ2 (Мачка: А7426, Абцлонал, Кина) је инкубиран са комплетом за обележавање флексибилних 488 антитела (Мачка: КФА001, Протеинтецх, САД) за синтетизу персонализованог БЦАТ2 флуоресцентног антитела за анализу проточне цитометрије. Затим су БЦАТ2 антитело и антитела повезана са Т-ћелијама помешана и додата у једноћелијску суспензију мишје слезине ради истраживања интеракције између нивоа експресије БЦАТ2 на ЦД8+Т ћелијама и активности ЦД{{357} }Т ћелија. Стратегија гајта анализе проточне цитометрије приказана је на слици С30 (Информације за подршку). Обојени узорци су детектовани на Цитек ДкпАтхена Флов цитометрији (Цитек Биосциенцес, САД), а подаци су анализирани софтвером верзије Фловјо (БД Биосциенцес, САД). Статистичка анализа: Подаци су представљени као средња вредност ± СД. т-тест са или без Велцх корекције је коришћен за поређење континуираних варијабли између две групе. Једносмерна АНОВА анализа са или без Бровн-Форситхе и Велцх тестова је коришћена за поређење континуалних варијабли између више група. Хи-квадрат тест или Фишеров егзактни тест је примењен за поређење дихотомних варијабли. За процену интензитета корелације између различитих варијабли коришћен је тест Пирсоновог или Спирмановог коефицијента корелације. Каплан–Мајерова крива преживљавања је коришћена да покаже прогностичке анализе дихотомних варијабли, а тест лог ранга је коришћен за процену статистичких разлика. Двострано п < 0,05 дефинисано је као праг значајности. Р софтвер (верзија 4.0) и ГрапхПад Присм8 су примењени за обраду података у студији.
Референце
[1] РЛ Сиегел, КД Миллер, ХЕ Фуцхс, А. Јемал, ЦА: Цанцер Ј. Цлин. 2021, 71, 7.
[2] ВГ Пател, ВК Ох, МД Галски, Ца-Цанцер Ј. Цлин. 2020, 70, 404.
[3] Р. Надал, Ј. Беллмунт, Лечење рака. Рев. 2019, 76, 10.
[4] а) МД Галски, А. Арија ЈА, А. Бамиас, ИД Давис, М. Де Сантис, Е. Кикуцхи, Кс. Гарциа-Дел-Муро, У. Де Гиорги, М. Менцингер, К. Изуми, С. Панни, М. Гумус, М. Озгуро˘глу, АР Калебасти, СХ Парк, Б. Алексеев, ФА Сцхутз, ЈР Ли, Д. Ие, Њ Вогелзанг, С. Бернхард, Д. Таиама, С. Мариатхасан, А Мецке, А. Тхастром, Е. Гранде, Ланцет 2020, 395, 1547; б) МД Галски, А. Мортазави, МИ Миловски, С. Георге, С. Гупта, МТ Флеминг, ЛХ Данг, ДМ Геинисман, Р. Валлинг, РС Алтер, М. Кассар, Ј. Ванг, С. Гупта, Н. Давис, Ј. Пицус, Г. Пхилипс, ДИ Куинн, ГК Хаинес 3рд, НМ Хахн, К. Зхао, М. Иу, СК Пал, Ј. Цлин. Онцол. 2020, 38, 1797; ц) Т. Повлес, СХ Парк, Е. Воог, Ц. Цасерта, БП Валдеррама, Х. Гурнеи, Х. Калофонос, С. Радуловић, В. Демеи, А. Уллен, И. Лориот, СС Сридхар, Н. Тсуцхииа, Е. Копилтсов, ЦН Стернберг, Ј. Беллмунт, ЈБ Арагон-Цхинг, ДП Петрилак, Р. Лалиберте, Ј. Ванг, Б. Хуанг, Ц. Давис, Ц. Фовст, Н. Цоста, ЈА Блаке-Хаскинс , А. ди Пиетро, П. Гривас, Н. Енгл. Ј. Мед. 2020, 383, 1218.
[5] а) РВ Јенкинс, ДА Барбие, КТ Флахерти, Бр. Ј. Рак 2018, 118, 9; б) АЈ Сцхоенфелд, МД Хеллманн, Цанцер Целл 2020, 37, 443.
[6] а) ДС Цхен, И. Меллман, Натуре 2017, 541, 321; б) ТФ Гајевски, Л. Цорралес, Ј. Виллиамс, Б. Хортон, А. Сиван, С. Спрангер, Адв. Екп. Мед. Биол. 2017, 1036, 19; ц) ДЦ Хинсхав, ЛА Схевде, Цанцер Рес. 2019, 79, 4557.
[7] а) СМ Вареки, Ј. Иммунотхер. Рак 2018, 6, 157; б) Б. Зханг, К. Ву, Б. Ли, Д. Ванг, Л. Ванг, ИЛ Зхоу, Мол. Рак 2020, 19, 53.
[8] ЈР Маиерс, МЕ Торренце, ЛВ Данаи, Т. Папагианнакопоулос, СМ Давидсон, МР Бауер, АН Лау, БВ Ји, ПД Дикит, АМ Хосиос, А. Муир, ЦР Цхин, Е. Фреинкман, Т. Јацкс, БМ Волпин, Д. Виткуп, МГ Вандер Хеиден, Сциенце 2016, 353, 1161.
[9] ЈТ Ли, М. Иин, Д. Ванг, Ј. Ванг, МЗ Леи, И. Зханг, И. Лиу, Л. Зханг, СВ Зоу, ЛП Ху, ЗГ Зханг, ИП Ванг, ВИ Вен, ХЈ Лу , ЗЈ Цхен, Д. Су, КИ Леи, Нат. Целл Биол. 2020, 22, 167.
[10] ЈХ Лее, ИР Цхо, ЈХ Ким, Ј. Ким, ХИ Нам, СВ Ким, Ј. Сон, Екп. Мол. Мед. 2019, 51, 146.
[11] а) Х. Лаи, Кс. Цхенг, К. Лиу, В. Луо, М. Лиу, М. Зханг, Ј. Миао, З. Ји, ГН Лин, В. Сонг, Л. Зханг, Ј. Бо, Г. Ианг, Ј. Ванг, ВК Гао, Инт. Ј. Цанцер 2021, 149, 2099; б) Д. Ламбрецхтс, Е. Ваутерс, Б. Боецкк, С. Аибар, Д. Ниттнер, О. Буртон, А. Бассез, Х. Децалуве, А. Пирцхер, К. Ван ден Еинде, Б. Веинанд, Е. Вербекен, П. Де Леин, А. Листон, Ј. Ванстеенкисте, П. Цармелиет, С. Аертс, Б. Тхиенпонт, Нат. Мед. 2018, 24, 1277.
[12] Н. Нагарсхетх, МС Вицха, В. Зоу, Нат. Рев. Иммунол. 2017, 17, 559.
[13] а) Е. Стеллоо, АМЛ Јансен, ЕМ Оссе, РА Ноут, ЦЛ Цреутзберг, Д. Руано, ДН Цхурцх, Х. Морреау, В. Смит, Т. ван Везел, Т. Боссе, Анн. Онцол. 2017, 28, 96; б) АС Тјалсма, А. Вагнер, ВНМ Дин јенс, ПЦ Евинг-Грахам, ЛСМ Алцала, МЕР де Гроот, КЕ Хамоен, АЦ ван Хоф, В. Хофхуис, ЛН Хофман, КЈ Хоогдуин, Ј. Каијсер, АЦФ Маккус, СЈЈ Мол, ГМ Плаисиер, К. Сцхелфхоут, ХПМ Смедтс, РА Смит, ПЈ Тиммерс, П. Венцкен, Б. Виссцхерс, ААМ ван дер Вурфф, ХЦ ван Доорн, Гинецол. Онцол. 2021, 160, 771.


