Преслушавање између различитих путева поправке ДНК доприноси неуродегенеративним болестима, део 3
Jun 14, 2024
5.1. ДДР и аутофагија
Неефикасан агрегатни клиренс који указује на дефектну аутофагију је једна од уобичајених карактеристика НДД. Током патогенезе АД, показано је и поремећена синтеза аутофагозома и смањен клиренс аутофагних супстрата [152–154].
Аутофагија је процес саморазградње и рециклаже ћелија, који нам може помоћи да уклонимо старење, оштећене и бескорисне органеле и протеине. Међутим, са старењем и лошим животним навикама, функција аутофагије људског тела постепено опада, што може наштетити нашем здрављу и памћењу.
Студије су показале да постоји блиска веза између аутофагије и памћења. Смањење функције аутофагије довешће до нагомилавања смећа у можданим ћелијама, што утиче на нормалан метаболизам и пренос сигнала у ћелијама, што доводи до губитка памћења и когнитивног оштећења. Нормалан процес аутофагије може подстаћи регенерацију и обнављање можданих ћелија, одржати здравље можданих ћелија и на тај начин помоћи у побољшању памћења и когнитивних способности.
Стога морамо активно одржавати функцију аутофагије и побољшати ниво аутофагије кроз добре животне навике и прилагођавање исхране. На пример, требало би да избегавамо претерано узимање нездраве хране као што су високи шећер и масноће, и да једемо више воћа и поврћа, интегралних житарица и друге хране богате антиоксидансима и целулозом, што може помоћи у смањењу стварања слободних радикала и промовисању процес аутофагије. Поред тога, требало би да одржавамо умерену вежбу, одржавамо весело расположење, избегавамо претерани стрес и анксиозност, итд., што ће помоћи да се побољша аутофагија и одржи здрав мозак и добро памћење.
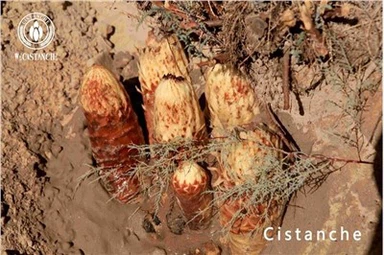
Генерално, постоји блиска веза између аутофагије и памћења, али можемо одржати ниво аутофагије кроз исправан начин живота и прилагођавање исхране, заштитити свој мозак и памћење и кренути ка здравијем и позитивнијем животу. Види се да треба да побољшамо своје памћење, а Цистанцхе може значајно да побољша памћење јер Цистанцхе може да регулише и равнотежу неуротрансмитера, као што је повећање нивоа ацетилхолина и фактора раста који су веома важни за памћење и учење. Поред тога, Цистанцхе такође може побољшати проток крви и промовисати испоруку кисеоника, што може осигурати да мозак добије довољну исхрану и енергију, чиме се побољшава виталност и издржљивост мозга.

Кликните на суплементе да бисте побољшали памћење
Акумулација -СИН у ПД указује на дисфункционалну аутофагију посредовану шапероном (ЦМА), која главни доприноси аутофагној деградацији -СИН [155].
Мутације у многим аутофагирецепторима, укључујући СКСТМ1/п62 [155], ОПТН и УБКЛН2, повезане су са патогенезом АЛС-а [156–158]. Асоцијације између ДДР-а и аутофагије као директног узрока НДД-а још увек нису добро утврђене, иако литература сугерише индиректне везе између машинерије за поправку ДНК и аутофагије кроз различите, неексклузивне путеве [159–161].
АТМ активација може да изазове индукцију аутофагије преко 50 АМП активиране протеин киназе (АМПК) као одговор на РОС [162,163]. Док Атм−/− неурони показују абнормалну аутофагију, сам АТМ се обрађује кроз аутофагичну деградацију [164]. Парп1 нокаут мишеви подвргнути акутном гладовању показали су недостатак аутофагије јетре, што имплицира физиолошку улогу ПАРП1 у аутофагији изазваној гладовањем [165].
Чини се да је веза између ДДР-а и аутофагије двосмерна, пошто је избацивање БЕЦЛИН1, протеина укљученог у индукцију аутофагије, смањило активност и нивое кључних ХР и НХЕЈпротеина, а такође је умањило формирање ДНК-ПК комплекса [166,167].
Показало се да СКСТМ1/п62 регулише однос између ХР и НХЕЈ промовишући последњу након зрачења [168]. ЦМА регулише нивое ЦХК1 и спречава хиперфосфорилацију и дестабилизацију МРН комплекса [169]. Производ транслације гена повезаног са отпорношћу на ултраљубичасто зрачење (УВРАГ), важног играча у покретању аутофагије, патролира активношћу поправке ДСБ кроз директно везивање за ДНК-ПК у НХЕЈ [170].
Занимљиво је да оштећење ДНК може да изазове митофагију, која може играти улогу у заштити ћелија од ћелијске смрти изазване оштећењем ДНК [171]. Иако није истражен за ДДР, наша група је недавно показала индукцију ендоплазматског стреса (ЕР стрес) посредовану аутофагијом за преживљавање након индукције РОС изазване радијацијом [172].+
5.2. ДДР и неуроинфламација
Неуроинфламација је још један уобичајени феномен примећен у различитим НДД. Верује се да авициоус циклус функционише, укључујући неуроинфламацију, оксидативни стрес и неуродегенерацију [173,174].
Запаљење може само по себи да изазове оштећење ДНК кроз стварање РОС и реактивних азотних врста (РНС). Запаљење повећава не само мутагене лезије ДНК, као што су 8-нитрогванидин и 8-окоГ, већ и негативно утиче на капацитет поправке ДНК инхибирајући многе важне ензиме за поправку ДНК [175,176].
Сун ет ал. је успоставио директне везе између оштећене ДНК и неуроинфламације [177].
Након везивања за цитосолну ДНК, цГАС претвара АТП и ГТП у циклични ГМП-АМП (цГМП), који се везује и активира стимулатор протеина ендоплазматског ретикулума гена интерферона (СТИНГ), коначно индукујући производњу интерферона типа И преко фактора транскрипције НФ-кБ и ИРФ3 [178].
Активација цГАС-СТИНГ-а је примећена у неколико НДД: у моделу пацова са недостатком Атм са неуроинфламаторним и неуродегенеративним фенотиповима, акумулација цитосолне ДНК која је довела до повећаних нивоа фосфорилисаног ТБК1 (индикативно за СТИНГ активацију) примећена је у различитим типовима ћелија, укључујући микроглију [179].

Ксу ет ал. показало да цГАМП може да потисне АД тако што подиже нивое ТРЕМ2 [180]. ИниПСЦ добијени АЛС моторни неурони пацијената, ТДП-43 је покренуо ослобађање мтДНК, што је довело до активације цГАС-СТИНГ-а, а показано је и неуроинфламација [181].
Индукција ИЛ6 као одговор на циркулишућу мтДНК без ћелија је пријављена у серуму пацијената са Паркинсоном [182]. Стога се упала посредована цГАС-СТИНГ-ом појављује као још једна уобичајена карактеристика НДД.
Укратко, појединачни ДДР протеини могу бити укључени у више од једног НДД (Слика 2) и могу индуковати неуродегенеративне карактеристике кроз њихову интеракцију са различитим ћелијским процесима (Слика 3).
6. Модел система за проучавање НДД и терапеутика
Иако је постмортем мождано ткиво корисно за мапирање главних структурних или молекуларних разлика у ДДР маркерима у касним фазама НДД, оно има ограничену моћ да објасни механизме болести.
Стога, животињски модели остају суштински алати за проучавање механизама који покрећу неуродегенерацију у перспективи животног тока. Одабир студија које повезују ДДР са НДД користећи различите системе модела о којима се расправљало горе или сугеришући одговарајуће моделе за проучавање овог унакрсног преслушавања, сажет је у табели 1.
Као што је очигледно из горње дискусије, глодари остају најчешће коришћене моделне животиње. За АД, на пример, постоји више од две стотине различитих модела глодара (хттпс://ввв.алзфорум.орг/ресеарцх-моделс/сеарцх (приступљено 19. фебруара 2021.)).
Међутим, ниједан модел не рекапитулира све кардиналфенотипове уочене код људских болести, илуструјући потребу за бољим моделима за моделирање људских НДД.

Бескичмењаци су релативно јефтини за одржавање и имају кратак животни век и циклус репродукције. Ова својства чине моделе без кичмењака подложним другом и генетском скринингу.
Нематода Цаенорхабдитис елеганс (Ц. елеганс) је пример животиње чије провидно тело омогућава праћење неуродегенерације ин виво. Доступни су хуманизовани животињски модели у којима трансгене животиње изражавају људски -СИН [187,188], А 1–42, ТАУ [189,190 ], ТДП-43 и СОД1 [191–193].
Постојање бихејвиоралних тестова омогућава проучавање одрживости и функционалности појединачних неурона током природног животног тока. Отуда, једноставне животиње нуде одличне могућности за проучавање комбинованих ефеката генетских и еколошких фактора ризика у вези са старењем, најважнијим фактором ризика за НДД.
Што се тиче доприноса ДДР-а, Ц. елеганс има мање редунданције гена за поправку ДНК, што га чини одличним алатом за дефинисање да ли и како протеини за поправку ДНК утичу на неуродегенерацију. Ограничење Ц. елеганс је да нема мозак. Дакле, потребни су модели кичмењака. Од њих, Данио рерио (Д. рерио) је све популарнији јер има васкулатуру и мозак одвојене крвно-можданом баријером [194–196].
Развој људске иПСЦ технологије отворио је врата за моделирање сложених болести мозга. Доступни су успостављени протоколи за генерисање различитих типова можданих ћелија из иПСЦ-ова изведених од пацијената у дводимензионалним (2Д) монослојним културама и користе их за модел АД [197,198], АЛС [199–201] и ПД [202,203].
Могућност увођења уређивања генома у иПСЦ (нпр. преко ЦРИСПР/ЦАС9) додатно повећава потенцијал ових ћелија да проучавају специфичне улоге појединачних гена. Поред тога, улога других типова можданих ћелија (укључујући глијалне ћелије, такође изведене из иПСЦ) може се проучавати у недавно развијеним системима ко-културе [204].
Ипак, системи 2Д културе не рекапитулирају сложеност мозга, а фенотипове као што је екстрацелуларна агрегација протеина је тешко уочити. Дакле, 2Д иПСЦ нису најпожељнији избор за моделирање НДД-ова.

Самоорганизација ембриоидних тела из иПСЦ-а, такозвани 3Д-органоидни модели, може нам омогућити да проучавамо ћелијски развој и међућелијске интеракције унутар 3Д микроокружења људског мозга [205].
Напредак у системима 3Д-културе довео је до формирања више типова можданих ћелија и специфичних можданих региона у овим органоидима (мини мозгови) [206]. Кортикални органоиди предњег мозга, органоиди средњег мозга и сфероиди моторних неурона изведени из АД и ХД, ПД иПСЦ пацијената са АЛС, респективно, могу показати фенотипове кардиналног ткива и стога могу бити веома корисни за разумевање ових сложених НДД (Слика 4) [207–213].

Слика 4. Потенцијал 2Д иПСЦ-а и 3Д-органоида за моделирање НДД-а. Фибробласти коже добијени од пацијената са НДД могу се берепрограмирати у иПСЦ. Ови иПСЦ се могу диференцирати у различите типове можданих ћелија укључујући различите типове неурона, микроглију итд.
3Д-органоиди добијени из иПСЦ-а садрже већину типова можданих ћелија (осим микроглије и васкулатуре, који се могу заједно култивисати са 3Д-органоидима) и могу показати главне фенотипове болести. Такође су приказане различите примене ових модела система. Креирано са БиоРендер.цом.
7. Закључци
Да резимирамо, и антиоксидативна одбрана и поправка ДНК спречавају накупљање оштећења ДНК и на тај начин спречавају развој НДД. Један пример антиоксидативне одбране је чистачица супероксид дисмутаза1 (СОД1) која штити неуроне од неуротоксичности посредоване амилоидом (А) [214]. И прекомерна експресија дивљег типа СОД1 и мутације у СОД1 су повезане са неколико НДД повезаних са узрастом [11,215,216].
Неколико клиничких испитивања је усмерено на дивљи тип СОД1 или мутантни СОД1 да спречи агрегацију и погрешно савијање у НДД, а антисенс олигонуклеотид је сада у фази ИИИ клиничког испитивања (НЦТ02623699).
Мали молекул, Аримокломол, који промовише правилно савијање СОД1 у ендоплазматском ретикулуму (ЕР) [11], налази се у фази ИИИ испитивања (НЦТ03491462). Остаје да се утврди да ли се циља на поправку ДНК или ДДР може развити у терапијске опције против НДД-а. разјашњено.
Међутим, појава активације ПАРП1 од стране ССБ-а као уобичајеног налаза у НДД-има и доступност инхибитора ПАРП1 сугеришу да би то могао бити пут којим треба следити. Међутим, директно циљање ПАРП1 носи ризик од штетних ефеката на друге ћелије и системе ткива. Једна од последица прекомерне активације ПАРП1 је исцрпљивање ћелијског НАД+, који је супстрат ПАРП1.
У нашем претходном раду, показали смо да је повећање нивоа НАД+ обећавајућа стратегија за стимулисање поправке ДНК и спречавање неуродегенерације код ретких болести поправке ДНК [140,146,184]. Да би се даље истражио терапеутски потенцијал ДДР-а, могу се користити студије међу врстама где се комбинују различити системи модела да би се рекапитулирали различити аспекти ових сложених болести.
3Д-органоидни модели изведени из иПСЦ-а појављују се као обећавајући моделни системи који могу ухватити сложеност ДДР-а и његово преслушавање са другим ћелијским процесима важним за одржавање здравља неурона.
Прилози аутора: Концептуализација, ХН и КС; методологија, СГ; софтвер, ПИ, ТС и К.С.; валидација, СГ, ПИ, ТС, ХН и КС; формална анализа, СГ; истрага, СГ; ресурси,ХН и КС; курирање података, СГ, ПИ, ТС и КС; писање - припрема оригиналног нацрта, СГ, ПИ, ТС, ХН и КС; писање-преглед и уређивање, СГ, ПИ, ТС, ХН и КС; визуализација, СГ,ХН и КС; надзор, ХН и КС; администрација пројекта, СГ, ХН и КС; фундингацкуиситион, ХН Сви аутори су прочитали и пристали на објављену верзију рукописа.
Финансирање: Ово истраживање је финансирала Југоисточна регионална здравствена управа (пројекат бр. 279922 и 2017029) и Норвешки истраживачки савет (грант бр. 302483).
Изјава институционалног одбора за ревизију: Није применљиво.
Изјава о информисаној сагласности: Није применљиво.
Изјава о доступности података: У овој студији нису креирани или анализирани нови подаци. Дељење података се не односи на овај чланак.
Захвалнице: Захваљујемо Еллен Тенстад @СциенцеСхапед, Царини Кнудсон и Францисцо Јосе Нарањо Галиндо за помоћ у графичким илустрацијама и Евандру Феи Фангу, Диани Л. Бордин и Лиси Лирусси за критичко читање рукописа.
СГ и ПИ су финансирани грантом од стране Регионалне здравствене управе за југоисток (пројекат бр. 279922 и 2017029), а ТСГ је финансиран грантом Норвешког истраживачког савета (грант бр. 302483).

Сукоб интереса: Потврђујемо да сви аутори немају сукоб интереса према овом рукопису.
Референце
1. Деланеи, С.; Јарем, ДА; Волле, ЦБ; Иенние, ЦЈ Хемијске и биолошке последице оксидативно оштећеног гванина у ДНК.Фрее Радиц. Рес. 2012, 46, 420–441. [ЦроссРеф]
2. Схенг, З.; Ока, С.; Тсуцхимото, Д.; Аболхассани, Н.; Номару, Х.; Сакуми, К.; Иамада, Х.; Накабеппу, И. 8-Оксогванин изазива неуродегенерацију током поправке ексцизијске базе ДНК посредоване МУТИХ. Ј. Цлин. Инвестиг. 2012, 122, 4344–4361. [ЦроссРеф]
3. Крокан, ХЕ; Драблос, Ф.; Слуппауг, Г. Урацил у ДНК-појава, последице и поправка. Онцогене 2002, 21, 8935–8948.[ЦроссРеф]
4. Линдахл, Т.; Ниберг, Б. Стопа депуринације нативне деоксирибонуклеинске киселине. Биохемија 1972, 11, 3610–3618. [ЦроссРеф]
5. Цхин-Цхан, М.; Наваро-Иепес, Ј.; Куинтанилла-Вега, Б. Загађивачи животне средине као фактори ризика за неуродегенеративне поремећаје: Алцхајмерове и Паркинсонове болести. Фронт. Целл Неуросци. 2015, 9, 124. [ЦроссРеф]
6. Рамацхандиран, С.; Хансен, ЈМ; Јонес, ДП; Рицхардсон, ЈР; Миллер, ГВ Дивергентни механизми токсичности параквата, МПП+, андротенона: Оксидација активације тиоредоксина и каспазе{2}}. Токицол. Сци. 2007, 95, 163–171. [ЦроссРеф]
7. Хоу, И.; Дан, Кс.; Баббар, М.; Веи, И.; Хасселбалцх, СГ; Цротеау, ДЛ; Бохр, ВА Старење као фактор ризика за неуродегенеративне болести. Нат. Рев. Неурол. 2019, 15, 565–581. [ЦроссРеф] [ПубМед]
8. Висс-Цораи, Т. Старење, неуродегенерација и подмлађивање мозга. Природа 2016, 539, 180–186. [ЦроссРеф] [ПубМед]
9. Лопез-Отин, Ц.; Бласцо, МА; Партридге, Л.; Серрано, М.; Кроемер, Г. Карактеристике старења. Ћелија 2013, 153, 1194–1217. [ЦроссРеф][ПубМед]
10. Фанг, ЕФ; Сцхеибие-Кнудсен, М.; Цхуа, КФ; Матсон, МП; Цротеау, ДЛ; Бохр, ВА Оштећење нуклеарне ДНК сигнализирајући томитохондрије у старењу. Нат. Рев. Мол. Целл Биол. 2016, 17, 308–321. [ЦроссРеф]
11. Трист, БГ; Давиес, КМ; Цоттам, В.; Геноуд, С.; Ортега, Р.; Роудеау, С.; Цармона, А.; Де Силва, К.; Васингер, В.; Левис, СЈГ; ет ал. Протеинопатија супероксид дисмутазе 1 слична амиотрофичној латералној склерози повезана је са губитком неурона у мозгу код Паркинсонове болести. Ацта Неуропатхол. 2017, 134, 113–127. [ЦроссРеф]
12. Рултен, СЛ; Цалдецотт, КВ поправка ланца ДНК и неуродегенерација. ДНК поправка 2013, 12, 558–567. [ЦроссРеф]
For more information:1950477648nn@gmail.com