Разлике у коренским ексудатима Халокилон Аммодендрона у годинама састојина и одговору на клијање семена Цистанцхе Десертицола
Oct 08, 2026
Абстрацт
Да би се разјаснило како коренски ексудати одХалокилон аммодендрон(саксаул) варирају у зависности од старости састојина и какоЦистанцхе десертицола(Цистанцхе) клијавост семена одговара на ове разлике, истражили смо саксуалне састојине старе 1, 3 и 6 година у региону Алар, Синђианг, Кина. Узорци ексудата корена су сакупљени и анализирани коришћењем нециљане метаболомике засноване на ЛЦ-МС да би се карактерисале разлике у саставу. паралелно,Цистанцхесеме је третирано кореновим ексудатом из различитих старосних група и утврђена је клијавост семена.
Резултати су показали значајне разлике уЦистанцхестопа клијања међу третманима. Третман ексудатом од 3 године дао је највећу стопу клијања, значајно већу од третмана који су користили ексудате из једногодишњих и шестогодишњих састојина, док није откривена значајна разлика између једногодишњег и шестогодишњег третмана. Метаболомска анализа је показала да су се укупни метаболички профили ексудата саксуалног корена јасно разликовали међу узрастима састојина, а највећи број диференцијалних метаболита настао је између 3-годишњих и 1-годишњих састојина. Диференцијални метаболити су углавном обогаћени шећерима, молекулима повезаним са витамином Б6, флавоноидима/фенолима и молекулима повезаним са липидима. Главне разлике у путевима укључивале су метаболизам алфа-линоленске киселине, метаболизам витамина Б6 и путеве везане за флавоноиде. Даљи скрининг интегрисањем фенотипова клијања показао је да су репрезентативне диференцијалне карактеристике које су у складу са вишом клијавошћу такође концентрисане у овим категоријама метаболита и путевима.
Ови налази указују на јасну хемијску диференцијацију ексудата саксуалног корена између старости састојина и сугеришу да трогодишње састојине саксаула могу развити хемијску позадину ексудата која је повољнија заЦистанцхеклијавост семена. Резултати пружају теоријску основу за развој и оптимизацијуЦистанцхетехнике инокулације.
Кључне речи: Халокилон аммодендрон; Цистанцхе десертицола; ексудати корена; метаболомика; градијент старости стајања

Увод
Обнова сушних пустињских екосистема често се ослања на успостављање и континуирано ширење кључних жбунова [1–2].Халокилон аммодендронје типична врста дрвећа за фиксирање песка у пустињским регионима северозападне Кине и игра изузетну улогу у ветролоцима и фиксирању песка, стабилизацији површине и одржавању структуре вегетације [3–4]. Око управљања и побољшања еколошке функције плантажа саксаула постепено се формирао свеобухватан пут „еколошке обнове – газдовања шумама – коришћења ресурса” [5–7]. Међу овим приступима, инокулацијаЦистанцхе десертицолапод плантажама саксаула сматра се репрезентативним развојним моделом који балансира еколошке и индустријске користи [8–9].
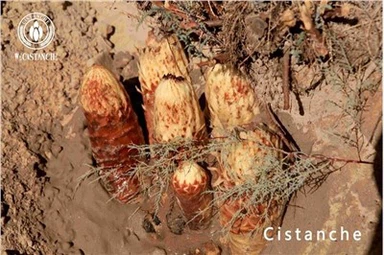
База за узгој Цистанцхе у Синђангу, Кина

Цистанцхе десертицолаима значајну економску вредност и подстакао је потражњу за вештачким узгојем [10–11]. Међутим, у производњи великих размера, стопа успеха инокулације паразитима значајно варира, што утиче на стабилност и скалабилност овог модела [12].
У систему саксаул–цистанш, клијање семена и рано препознавање домаћина су критични кораци који одређују да ли се може успоставити паразитски однос [12–13].Цистанцхесемена су изузетно мала, а почетак клијања у великој мери зависи од стимулације ексудата корена домаћина [14–15]. Након клијања, саднице морају за кратко време да лоцирају корене домаћина и уђу у процес формирања хаусторијума [16]. Због тога се интензитет и састав сигнала домаћина директно одражавају на ефикасност клијања и последичну стопу успеха паразитизма [16–17]. За обавезне паразитске биљке, ови сигнали такође могу да формирају временско-просторну „комбинацију услова“ за коју је већа вероватноћа да ће покренути клијање, тј. такозвани прозор клијања [18–19].
Ексудати корена саксаула садрже више класа једињења која могу учествовати у процесима препознавања и индукције домаћина, као што су кинони, органске киселине и молекули повезани са хормонима. На њихов састав утичу развојна фаза биљака и окружење [20–21]. Претходне студије сугеришу да ексудати корена динамички варирају у зависности од годишњих доба или фаза раста, што може даље довести до разлика уЦистанцхебрзина клијања, ефикасност формирања хаусторијума и успостављање паразитизма [22]. Из перспективе управљања плантажама, градијент старости стајања често одговара развоју коријенског система домаћина, акумулацији уноса угљеника и стабилизацији микроокружења ризосфере. Сходно томе, хемијска позадина ексудата може бити подвргнута систематском прилагођавању [23–26].
Међутим, докази су и даље недовољни о томе како разлике у старости преобликују хемијски спектар ексудата корена саксаула и да ли такве промене могу произвести квантитативне реакције клијања. Овај јаз такође ограничава директне квантитативне смернице за одабир старости домаћина и заказивање кључних периода управљања.
Метаболомика може открити промене у профилима метаболита корена ексудата. Мултиваријантне статистичке методе као што су анализа главних компоненти (ПЦА) и ортогонална парцијална дискриминантна анализа најмањих квадрата (ОПЛС-ДА) могу се користити за разликовање група и идентификацију диференцијалних метаболита [27–28]. Даље означавање путање и анализа обогаћивања помаже у тумачењу правца биохемијских промена [29–30]. Синхроним упоређивањем метаболомских излаза са функционалним фенотиповима (нпр. стопа клијања семена), хемијске разлике у ексудатима могу се повезати са мерљивим исходима – „да ли је клијавост промовисана и у којој мери“ – пружајући директнију подршку одлукама управљања и примене [31–33].
Стога се ова студија фокусирала на састојине саксаула различите старости у региону Алар на ивици пустиње Такламакан. Прикупили смо коренске ексудате из различитих узраста састојина за ЛЦ–МС нециљано профилисање метаболомике и спровелиЦистанцхетестови клијања семена који користе ове ексудате као третмане. Истражили смо промене у профилима метаболита корена ексудата изазване старењем (укупно одвајање, диференцијални скрининг метаболита и обогаћивање пута) и упоредили их са разликама у брзини клијања. Студија даје квантитативне референце за побољшањеЦистанцхеуспех инокулације и нуди емпиријски метаболомички доказ за хемијске интеракције између биљака домаћина и паразитских биљака у сушним регионима.
1 Материјали и методе
1.1 Студијско подручје
Подручје истраживања се налази у прелазној зони пустиња-оаза града Алар, на северној ивици пустиње Такламакан, Ксињианг, Кина. Регион има типичну топлу умерену, изузетно сушну климу, са јаком активношћу ветра и песка, оскудним падавинама и интензивним испаравањем. Средња годишња количина падавина износи 40,1–82,5 мм, док је средња годишња испаравања 1876,6–2558,9 мм. Извори светлости и топлоте су у изобиљу, а дневне температурне разлике су велике. У површинској вегетацији доминира пустињско шибље и ретко биље. Саксаул је главна конструктивна врста која се користи за локалне ветрозаштитне појасеве и појасеве за фиксирање песка, а регион је такође важно производно подручје за саксаул инокулисанеЦистанцхе.
1.2 Сакупљање и обрада узорака
Узорковање је обављено у априлу 2025. (пролеће) у региону Алар. Ексудати корена и синхрони узорци земљишта сакупљени су из састојина саксаула старости 1, 3 и 6 година.Цистанцхеексперименти клијања семена су спроведени након узорковања.
Третмани од 1, 3 и 6 година су означени као АО, АТ и АС, респективно. Сваки третман је укључивао три биолошке реплике, означене АО1–АО3, АТ1–АТ3 и АС1–АС3. Једногодишњи штандови представљају рану фазу оснивања; 3-годишње састојине представљају фазу снажног раста са активним процесима ризосфере; а 6-годишње састојине представљају релативно стабилну позорницу. На основу разлика у развојним фазама домаћина, упоредили смо хемијске варијације кореновог ексудата у годинама састојина и њихов однос саЦистанцхеклијавост семена.
1.2.1 Сакупљање кореновог ексудата
Ексудати корена су сакупљени методом екстракције ин ситу на терену. На свакој парцели састојка одабране су јединке саксаула са сличним статусом раста и без очигледних штеточина или болести. Три биљке су узорковане по старости састојине као биолошке реплике. Корени су пажљиво ископани око базе биљке, чиме су механичке повреде сведене на минимум. Приањајућа земља је нежно уклоњена; корење је испрано дејонизованом водом; затим су корени спаковани у вреће и поново закопани ин ситу током 24 сата претходног третмана.
После претходног третмана, корење је уклоњено и поново нежно испрано дејонизованом водом. Сегменти корена су умотани навлаженим филтер папиром да би се одржала влажност, стављени у епрувете за центрифугирање од 50 мЛ, запечаћени парафилмом и поново закопани ин ситу. После 24 х, сакупљени су сегменти корена умотани у филтер папиром, држани на леду и транспортовани у лабораторију.
У лабораторији је додато 100 мЛ дејонизоване воде, а узорци су мућкани 30 мин ради екстракције. Екстракт је вакуумски филтриран, концентрован под сниженим притиском и чуван на -80 степени за накнадне ЛЦ-МС нециљане метаболомичке анализе. Исти екстракти су такође коришћени за тестове третирања семена.
1.2.2 Узимање узорака земљишта и одређивање физичко-хемијских својстава земљишта
Узорци земљишта су сакупљени истовремено са ексудатима корена. Узорци су природно осушени на ваздуху, нечистоће су уклоњене и пропуштене кроз сито од 2 мм за физичко-хемијска мерења, укључујући пХ, укупни азот (ТН), укупни фосфор (ТП), укупни калијум (ТК), азот који се може хидролизовати (АН), расположиви фосфор (АП), расположиви калијум (АК) и органску материју у земљишту. Детаљне методе су дате у табели 1.
Табела 1. Физичко-хемијски индикатори земљишта и аналитичке методе
| Индикатор | Скраћеница | Аналитичка метода |
|---|---|---|
| пХ | - | Потенциометријска метода |
| Укупни азот | ТН | Кјелдахлов метод |
| Укупни фосфор | ТП | НаОХ фузија – колориметрија молибденског антимона (спектрофотометрија) |
| Укупни калијум | ТК | Метода фузије НаОХ |
| Алкално-хидролизабилни азот | АН | Метода алкалне дифузије |
| Доступан фосфор | АП | Спектрофотометријска метода |
| Доступан калијум | АК | Метода екстракције амонијум ацетата |
| Органска материја тла | СОМ | Метода оксидације калијум дихромата |
1.3 ЛЦ–МС нециљана метаболомика и претходна обрада података
Узорци ексудата корена су анализирани коришћењем течне хроматографије ултра-високих перформанси – масене спектрометрије високе резолуције (УХПЛЦ-ХРМС) у позитивном и негативном режиму јонизације електроспрејом. Необрађени подаци су били подвргнути екстракцији врха, корекцији времена задржавања, поравнању врха, руковању недостајућим вредностима и нормализацији пре низводних анализа.
Узорци контроле квалитета и празне контроле су коришћени да би се уклонили врхови позадинске интерференције и карактеристике са слабом поновљивошћу да би се побољшала стабилност и упоредивост података. Идентификација и напомена метаболита заснивали су се углавном на тачној маси, времену задржавања и обрасцима фрагментације МС/МС, који су упарени са ХМДБ, МЕТЛИН, МассБанк и мапирани на КЕГГ за анализу путање. Резултати напомена су филтрирани према поузданости подударања, а спроведена је категоризација хемијских класа и сумирање на нивоу пута.
1.4 ЦистанцхеЕксперимент клијања семена
1.4.1 Предтретман семена
ПрикупљеноЦистанцхесеме је стављено на 30 степени у инкубатор са константном температуром 1 х. Облози семена су уклоњени, а семе је површински стерилисано у 2% натријум хипохлориту 15 минута, испрано три пута стерилном дестилованом водом и осушено на стерилном филтер папиру.
1.4.2 Пре-експеримент и одређивање базалних услова за клијање
Да би се обезбедила упоредивост између третмана са ексудатима из различитих узраста састојине, спроведен је пре-експеримент за скрининг услова додавања за гиберелин и флуридон. На основу резултата пре-тестирања, комбинација са бољим перформансама клијања и стабилном поновљивошћу изабрана је као базални услов про-клијања: додатак 1 мЛ 1 г·Л−1^{-1}−1 гиберелина и 1 мЛ 10 мг·Л−1^{-1}−1 флуридона.
1.4.3 Третмани коренским ексудатом из различитих узраста састојина
Под обједињеним базалним условима про-клијања, једнаке количине узорака кореновог ексудата из 1-, 3- и 6-годишњих састојина саксаула су додате ради поређењаЦистанцхереакције клијања семена. Ова студија се фокусирала на ефекте третмана ексудата из различитих узраста састојине и није укључивала градијент концентрације ексудата.
За сваки третман, 50 претходно третираних семена је стављено у Петријеве посуде методом филтер-папира и инкубирано на 25 степени у мраку. Клијавост је забележена након 10 дана. Као критеријум клијања коришћен је радикул (заметна цев) дужине > 1 мм. Сваки третман је имао три понављања.
1.5 Статистичка анализа
Након претходне обраде и нормализације, метаболомички подаци су анализирани коришћењем хијерархијске анализе груписања, ПЦА и ОПЛС-ДА да би се процениле укупне разлике између старости састојина. Диференцијални метаболити су прегледани коришћењем ВИП > 1 и П < 0,05. Венови дијаграми, дијаграми вулкана, груписане топлотне мапе и анализе обогаћивања КЕГГ пута коришћени су за тумачење главних диференцијалних метаболичких карактеристика.
Цистанцхестопе клијавости семена су анализиране једносмерном АНОВА; пост хоц поређења су извршена коришћењем Тукеи-овог теста. Ниво значаја је постављен на =0.05\\алпха=0.05 =0.05.
2 Резултати и анализа
2.1 Физичко-хемијске карактеристике земљишта
Физичко-хемијски показатељи земљишта су показали одређене варијације између различитих старости састојина, али је укупна величина промене била ограничена (Табела 2). Земљишта су била алкална на свим парцелама, са пХ вредности од 8,35 до 8,83. Садржај укупног азота, укупног фосфора, укупног калијума и органске материје је генерално низак. 3-годишње трибине су имале релативно више ТН, ТК, СОМ и АК; 6-годишње трибине су имале нешто веће ТП и АП; а 1-годишње трибине су имале релативно већи АН. Све у свему, позадина тла је донекле флуктуирала у годинама састојина без доследног тренда правца. Стога су се касније анализе углавном фокусирале на разлике између корена и ексудата и њихову кореспонденцију саЦистанцхереакције клијања семена.
Табела 2. Физичко-хемијске особине земљишта
| Третман | пХ | ТН (г·кг⁻¹) | ТП (г·кг⁻¹) | ТК (г·кг⁻¹) | АН (мг·кг⁻¹) | АП (мг·кг⁻¹) | АК (мг·кг⁻¹) | СОМ (г·кг⁻¹) |
|---|---|---|---|---|---|---|---|---|
| АО | 8.83 | 0.129 | 0.591 | 6.76 | 11.672 | 7.171 | 159.783 | 2.660 |
| АТ | 8.35 | 0.165 | 0.604 | 10.69 | 9.114 | 7.381 | 377.900 | 3.186 |
| АС | 8.82 | 0.101 | 0.649 | 7.08 | 10.697 | 8.086 | 185.962 | 2.547 |
напомене:АО=1-годишњи штанд; НА=3-години штанд; КАО=6- година стоји.
2.2 Ефекти коренских ексудата из различитих узраста састојина наЦистанцхеКлијање семена
Цистанцхестопе клијавости семена су се значајно разликовале међу третманима са ексудатом корена из различите старости састојине (Слика 1). Трогодишњи третман ексудатом састојине (АТ) дао је највећу стопу клијања од 84,66% ± 1,15%. Једногодишњи (АО) и 6-годишњи (АС) третмани дали су 80,89% ± 2,04% и 80,67% ± 0,67%, респективно. Једносмерна АНОВА је показала значајну разлику између третмана (П=0.022). Тукеијев пост хоц тест је показао да је АТ значајно већи од АО (П=0.038) и АС (П=0.030), док се АО и АС нису значајно разликовали (П=0.980).

Фиг. 1 Разлике у стопи клијања семена Цистанцхе десертицола под третманима ексудатом корена са састојина Халокилон аммодендрона различите старости
Ови резултати сугеришу да током пролећног периода, ексудати корена из различитих старости састојина одговарају јасним разликама уЦистанцхереакције клијања семена, а ексудати из трогодишњих састојина показују јачи потенцијал за подстицање клијања. Да бисмо даље објаснили ове разлике, затим смо анализирали целокупно одвајање профила метаболита и диференцијалне метаболичке карактеристике.
2.3 Укупне разлике у коренским ексудатима у годинама састојина
2.3.1 Свеукупно раздвајање метаболичких профила корена и ексудата
Метаболички профили ексудата корена су јасно диференцирани у зависности од старости састојина. Глобална топлотна мапа (слика 2) је показала да је већина узорака у истој старости састојина груписана на истој грани, што указује на добру конзистентност унутар групе. Узорци из различитих старости састојине показали су релативно јасне обрасце груписања, што сугерише да је састав ексудата реорганизован са узрастом састојине.
Резултати ПЦА (Слика 3) су показали да прве две главне компоненте објашњавају 46,5% укупне варијансе; ПЦ1 и ПЦ2 су објаснили 32,1% и 14,4%, респективно. Узорци различите старости састојине показали су препознатљиву дистрибуцију у простору ординације. Конкретно, једногодишњи узорци су показали укупни тренд дистрибуције различит од 3- и 6-годишњих узорака, што указује на структурну диференцијацију у укупном саставу ексудата са узрастом састојине. Иако је одређена варијабилност унутар групе остала, тренд раздвајања у вези са стажом био је јасан.

2.3.2 Дискриминација између група
Да би се даље упоредиле разлике између старости састојина, поређења у пару (АО вс. АТ, АО вс. АС, АТ вс. АС) су спроведена на основу података негативног јонског мода (Слика 4). Сва три поређења су показала јасно раздвајање и добро груписање биолошких реплика, показујући стабилне метаболичке разлике између старости састојина.
Сви ОПЛС-ДА модели су показали добро уклапање и предиктивне перформансе, са Р2И=0.998–1.000 и К2=0.663–0.873, што указује на робусну дискриминацију узорака ексудата корена између старости састојина. Раздвајање је било најизраженије између АС и АО, што указује на највећу укупну композициону разлику између 1- и 6-годишњих ексудата састојине. АТ је такође показао стабилно одвајање од АО и АС, што указује да трогодишњи ексудати већ поседују различите карактеристике специфичне за стадијум. Све у свему, профили метаболита из корена ексудата су били веома дискриминаторни у свим узрастима састојина, подржавајући низводне анализе диференцијалних метаболита и њихову везу са разликама у клијању.

Слика. 3 Анализа главне компоненте

Фиг. 4 Поређење у пару ОПЛС-ДА резултата ексудата корена из Халокилон амодендрона различите старости
2.4 Главне диференцијалне метаболичке карактеристике ексудата корена саксаула
2.4.1 Број диференцијалних метаболита и заједничких карактеристика
Свако поређење у пару између старости састојине садржало је одређени број диференцијалних метаболита (Слика 5). Највећи број се десио у АТ наспрам АО, са 31 диференцијалним метаболитом. АС наспрам АО и АС наспрам АТ имале су 24 и 18 диференцијалних метаболита, респективно, што указује да су разлике између трогодишњег и једногодишњег ексудата биле најизраженије.
Седам диференцијалних метаболита је подељено у сва три поређења, што указује на релативно стабилан скуп метаболита који реагују на промене старосне доби. У међувремену, свако поређење је задржало неке јединствене диференцијалне метаболите, одражавајући јасне карактеристике специфичне за стадијум у променама ексудата. Све у свему, разлике у старости су изражене не само у броју метаболита, већ иу структури у којој су коегзистирали заједнички и специфични диференцијални метаболити.

Фиг. 5 Венов дијаграм диференцијалних метаболита у ексудату корена Халокилон аммодендрона у различитим узрастима
2.4.2 Обрасци промене диференцијалних метаболита
Вулкански дијаграми и груписане топлотне карте указивале су на модуларне обрасце промене у ексудату корена током старости састојина. У сва три поређења (Слика 6), значајни метаболити су распоређени на обе стране вулканских парцела, што указује и на горе и наниже регулисане метаболите између старости састојина. Многе значајне карактеристике су показале велике промене на преклопу и снажан значај, што сугерише да је раздвајање групе заједно вођено скупом концентрисаних метаболичких промена, а не раштрканим појединачним варијацијама.
На основу ознака метаболита, главне диференцијалне категорије су концентрисане у шећерима, молекулима повезаним са витамином Б6, флавоноидима/фенолима и молекулима повезаним са липидима. Репрезентативни диференцијални метаболити укључивали су сахарозу, изопиридоксал, линоленат (18:3), ПА 40:7, метил гиберелин А9 и секологанин.
АТ у односу на АО је садржао највећи број диференцијалних метаболита, што указује на јачи помак хемијског учинка са једногодишњег на 3-годишње задржавање. Разлике између АТ и АС су такође биле стабилне, што указује да 3-годишња фаза није само линеарна транзиција између 1-годишњег и 6-годишњег стадија, већ има јасне карактеристике специфичне за етапу. Све у свему, разлике између старости састојина углавном су одражавале координиране промене између горе наведених категорија метаболита, а не изоловане флуктуације у појединачним метаболитима.

Фиг. 6 Вулкански дијаграми диференцијалних метаболита у ексудату корена Халокилон аммодендрона у различитим узрастима састојине
Топлотна мапа репрезентативних диференцијалних метаболита (Слика 7) је даље показала добро груписање биолошких реплика и јасно раздвајање између старости састојина, што указује да се разлике у старости састојине директно одражавају у профилима диференцијалних метаболита. Група од 3 године (АТ) је показала делимичне сличности са АО или АС у различитим модулима метаболита, али је задржала своје посебне карактеристике. Неки метаболити су достигли врхунац у АТ док су остали нижи у АО и АС; други су били нижи у АТ, али виши у АО или АС. Дакле, трогодишња фаза није пратила једноставан монотони образац повећања/смањења, већ јасну реорганизацију специфичну за фазу. Посебно, молекули повезани са витамином Б6 (нпр. изопиридоксал, пиридоксат), флавоноиди/феноли (нпр. кверцетин, изокверцитрин, скополин) и молекули повезани са липидима (нпр. линоленат 18:3, ПА 40:7, модуларни узорак; ФАО28) у складу са анализама дискриминације.

Фиг. 7 Хијерархијска кластерска топлотна мапа репрезентативних диференцијалних метаболита
2.4.3 Главни укључени метаболички путеви
Анализа КЕГГ пута је показала да разлике у ексудату корена саксаула које су повезане са старењем су првенствено укључивале метаболизам липида, метаболизам витамина/кофактора и секундарни метаболизам везан за флавоноиде (Слика 8). Метаболизам алфа-линоленске киселине се појавио са релативно високим фактором утицаја на пут, који представља истакнути пут везан за липиде под разликама у годинама. Метаболизам витамина Б6 је такође показао велики значај, што указује на значајне промене у малим молекулима повезаним са кофакторима и редокс хомеостазом.
У секундарном метаболизму, биосинтеза флавоноида, биосинтеза флавона и флавонола и деградација флавоноида су обогаћени, што указује да је фенолно-флавоноидни модул главни правац варијације старости. Поред тога, путеви ароматичних једињења као што је деградација бензоата показали су одређене одговоре. Свеукупно, разлике у ексудату корена саксаула које су изазване током стајања биле су углавном структурисане око метаболизма липида, метаболизма витамина Б6 и секундарног метаболизма флавоноида/фенола.
2.5 Репрезентативни диференцијални метаболити прегледани на основу фенотипова клијања
Да би се даље разјасниле везе између разлика ексудата иЦистанцхефенотипови клијања, диференцијални метаболити су интегрисани са обрасцима брзине клијања. Тестови клијања су показали да је АТ третман имао највећу стопу клијања, док су АО и АС били нижи и нису се значајно разликовали. Овај образац сугерише да трогодишњи ексудати саксаула могу садржати хемијске компоненте које су повољније за промоцијуЦистанцхеклијавост семена.
На основу овог фенотипа, дали смо приоритет метаболитима који су се (и) појавили у поређењу са АТ наспрам АО и АТ наспрам АС и (ии) показали трендове промене у складу са већом клијавошћу (Табела 3). Ове диференцијалне карактеристике кандидата су углавном биле концентрисане у шећерима, молекулима повезаним са липидима, молекулима повезаним са витамином Б6 и флавоноидима/фенолима, и били су повезани са метаболизмом алфа-линоленске киселине, метаболизмом витамина Б6 и путевима везаним за флавоноиде. Ови резултати указују на јасно груписање категорија међу метаболичким карактеристикама кандидата у складу са већом клијавошћу, што сугерише да ови метаболити или сродни путеви могу допринети фенотипу клијања.

Фиг. 8 Дијаграм мехурића фактора који утичу на метаболички пут
Таб. 3 Подударност између диференцијалних карактеристика коренских ексудата из састојина Халокилон аммодендрона различите старости и клијања семена Цистанцхе десертицола
| Група за поређење | Врста одговора клијања | Главне диференцијалне категорије | Карактеристике разлике | Репрезентативни диференцијални метаболити |
|---|---|---|---|---|
| АТ против АО | Стопа клијања уАТ вишинегоАО | Шећери, повезани са витамином Б6, флавоноиди/фенолне киселине, липиди | Значајна модуларна реорганизацијау ексудатима на3-годишњестајати старост | сахароза; изопиридоксал; пиридоксат; кверцетин; Исокуерцитрин; линоленат (18:3) |
| АС против АТ | Стопа клијања уКАО ниженегоАТ | Шећери, флавоноиди, гиберелини | Разликовање између6 годинаи3-годишњестоји насигнализацијаисекундарни-метаболизамнивоа | сахароза; Исокуерцитрин; Метил гиберелин А9 |
| АС против АО | Разлика у стопи клијањаније значајно | Сродни витамину Б6, липиди | Велике метаболичке разликеизмеђу1-годинаи6 годинастоји, алинема значајне разлике у клијавости | Изопиридоксал, итд. |
3 Дискусија
3.1 Старост стајања покреће хемијску диференцијацију ексудата корена саксаула
Ексудати корена биљака нису статични; они се динамички прилагођавају стадијуму развоја, алокацији ресурса и променама животне средине ризосфере. МцЛаугхлин и др. [22] су показали да ексудати корена значајно варирају у зависности од биљних врста и временских скала, што указује на снажну просторно-временску динамику. Цхен ет ал. [23] је даље известио да и старост стабла и годишње доба значајно мењају стратегије ексудације корена и састав метаболита у плантажама кинеске јеле, показујући јасне разлике у узрасту у метаболичким резултатима. Ове студије подржавају физиолошко-еколошку основу за диференцијацију хемије ексудата корена на основу стадијума развоја.
У овој студији, ексудати корена саксаула су показали јасну диференцијацију између старости састојина на нивоу укупног метаболита. Груписање топлотних мапа, ПЦА и ОПЛС-ДА су показали стабилно раздвајање између узраста састојина, што указује да старост састојина може изазвати хемијску реорганизацију ексудата корена саксаула специфичну за стадијум. Ово се слаже са постојећим сазнањима да фаза раста биљака утиче на састав ексудата и сугерише да у систему домаћина саксаул-Цистанцхе, варијација старости може бити важан еколошки фактор који обликује позадину сигнала добијених из корена.
Штавише, промене старосне доби одговарају не само развојној фази домаћина, већ и променама у позадини животне средине ризосфере. Нивои хранљивих материја у земљишту, пХ, органске материје и услови салинитета могу утицати на усвајање хранљивих материја у биљкама, обрасце алокације угљеника и стабилност ризосфере, чиме се даље регулише састав и процеси ослобађања коренских ексудата.
3.2 Ексудати из 3-годишњег саксаула одговарају вишимЦистанцхеСтопе клијања семена
Клијање семена паразитских биљака у великој мери зависи од хемијских сигнала добијених од домаћина. Нелсон [16] је приметио да се биљке паразитске на корену у Оробанцхацеае типично ослањају на сигналне молекуле ослобођене корена домаћина да би открили присуство домаћина и покренули клијање; таква "клијавост изазвана домаћином" је кључни адаптивни механизам.
У овој студији,ЦистанцхеСтопа клијања семена је била највећа под 3-годишњим третманом саксаул ексудатом, значајно виша у односу на третмане са 1-годишњим и 6-годишњим ексудатом, док није примећена значајна разлика између 1-годишњег и 6-годишњег третмана. Ово указује да различити домаћини у старосној доби вероватно дају не само различите количине ексудата, већ и хемијски различите позадине које подстичу клијање. Чињеница да су АТ у односу на АО имали највише диференцираних метаболита сугерише да је хемијска реорганизација са једногодишњих на 3-годишње састојине била највећа, у складу са смером веће клијавости.
Овај образац се може односити на разлике у фази раста у саксаулу и одговарајућим стратегијама алокације ресурса. Једногодишњи саксаул је у раној фази успостављања, где биљке нису у потпуности стабилизоване, коренов систем и набавка ресурса су релативно ограничени, а метаболички резултати могу бити више фокусирани на одржавање сопственог раста. Шестогодишњи саксаул је у релативно зрелој фази, где се алокација ресурса може померити ка одржавању, структурној стабилности и прилагођавању животне средине, што доводи до стабилнијих стратегија ексудације. Насупрот томе, трогодишњи саксаул је генерално у фази снажног раста, са активнијом експанзијом корена, уносом хранљивих материја и подземним метаболизмом, због чега је већа вероватноћа да ће формирати богатији и варијабилнији профил ексудата корена. На основу тога, изражена реорганизација метаболита и већа стопа клијања у 3-годишњем третману могу одражавати повољније окружење сигнала ризосфере за иницирањеЦистанцхеклијање семена у периоду пролећног прозора.
3.3 Главне диференцијалне метаболичке карактеристике у складу са одговорима клијања
Метаболомика ефикасно открива промене у профилу метаболита у сложеним узорцима. Када се интегрише са анализом обогаћивања пута, омогућава идентификацију главних праваца промена на нивоу система. Претходне студије [31–33] сугеришу да комбиновање резултата метаболомике са функционалним фенотиповима као што је клијање семена помаже у циљању метаболита кандидата или путева који су у складу са фенотипским променама. За ексудате корена, стратегија „фанотип-прво, праћење метаболита“ је посебно корисна за идентификацију метаболичких карактеристика кандидата повезаних са специфичним биолошким ефектима.
У овој студији, скрининг вођен фенотипом је показао да су репрезентативне диференцијалне карактеристике које су у складу са вишом стопом клијања у трогодишњем третману углавном концентрисане у шећерима, молекулима повезаним са витамином Б6, флавоноидима/фенолима и молекулима повезаним са липидима, укључујући метаболизам алфа-линоленске киселине и метаболизам фланоленске киселине Б6. Механички, шећери могу одражавати промене у снабдевању и расподели угљеника у ризосфери; молекули повезани са липидима могу се односити на ремоделирање липида у мембрани и регулацију сигнала стреса; флавоноиди/феноли могу да учествују у препознавању домаћин-паразит и преносу сигнала ризосфере; и молекули повезани са витамином Б6 могу бити повезани са метаболичком хомеостазом и пуферовањем стреса. Ове метаболичке категорије су показале координисане промене у АТ групи.
ЦистанцхеИстраживања у вези с тим показују да фенолне киселине добијене из домаћина могу утицати на индукционе процесе, а фенолни/ароматични секундарни метаболити у коренима домаћина могу играти улогу у паразитским одговорима [14]. Иако ова студија не може директно да докаже да је један метаболит одлучујући фактор који покреће побољшану клијавост, промене груписане по категоријама примећене у трогодишњој групи сугеришу да предност која подстиче клијање вероватније потиче од координисане реорганизације више класа метаболита које формирају сложену хемијску позадину, а не случајно повећање једног молекула.
3.4 Практичне импликације и ограничења студије
Из перспективе производње и праксе, резултати сугеришу да током периода пролећног прозора, трогодишњи саксаул може имати бољи потенцијал заЦистанцхеинокулација, пружајући референцу за одабир старости домаћина у подшумамаЦистанцхеузгој и могући правци техничког развоја за побољшање успеха инокулације.
Међутим, ова студија је заснована на једном узорковању пролећа, а закључци углавном одражавају односе током пролећног прозора; директна екстраполација на целу годину још увек није подржана. Поред тога, улога позадине земљишта у обликовању карактеристика метаболита ексудата остаје у великој мери инференцијална и треба је даље потврдити путем корелационих анализа, контролисаних експеримената или мулти-омских приступа. Нециљана метаболомика такође има ограничења као што су интерференција изомера и ограничена поузданост идентификације за неке метаболите. Стога, молекуле везане за липиде, витамин Б6 и флавоноиде/фенолне молекуле треба сматрати кандидатима, а не потпуно потврђеним кључним факторима индукције. Коначно, на практичне исходе инокулације утичу вишеструки фактори укључујући успостављање паразита, формирање хаусторијума, каснији раст, теренске услове воде и соли и праксе управљања. Неопходан је даљи рад који комбинује испитивања инокулације на терену, истраживања утврђивања паразитизма и циљану валидацију кључних кандидата метаболита да би се ојачао превод у производњу у стварном свету.
4 Закључци
Хемијска реорганизација састава ексудата корена саксаула у годинама састојина јасно је кореспондирала са разликама уЦистанцхереакције клијања семена, наглашавајући важност развојне фазе домаћина у регулисању фенотипова клијања семена паразита. У априлу су се метаболички профили кореновог ексудата значајно разликовали у зависности од старости састојина. Ексудати саксаула од 3 године показали су најизраженије разлике и одговарали су највишимЦистанцхебрзина клијања семена. Репрезентативне диференцијалне карактеристике које су у складу са већом клијавошћу биле су углавном концентрисане у шећерима, молекулима повезаним са витамином Б6, флавоноидима/фенолима и молекулима повезаним са липидима, укључујући метаболизам алфа-линоленске киселине, метаболизам витамина Б6 и путеве везане за флавоноиде. Однос старост – ексудат – клијање није пратио једноставно линеарно побољшање; средња старост састојине је вероватније формирала хемијску позадину у складу са већом реакцијом клијања.
Прилози аутора
Џао Џен: концептуализација, методологија, истраживање, курирање података, анализа података, израда, визуелизација.
Фан Јинглонг: методологија, преглед и уређивање, визуализација, надзор, администрација пројекта, прибављање средстава.
Донг Веиканг: истрага, прикупљање података.
Зхоу Зхибин: ресурси, надзор, прибављање средстава.
Ли Бингвен, Ванг Шиџи: методологија, ресурси, надзор, прибављање средстава.