Људски церебелум и кортикоцеребеларне везе укључене у побољшање емоционалног памћења, 2. део
Nov 07, 2023
Емоционалне информације се боље памте од неутралних информација. Опсежни докази указују да амигдала и њене интеракције са другим церебралним регионима играју важну улогу у ефекту емоционалног узбуђења који побољшава памћење. Док је мали мозак укључен у условљавање страха, његова улога у емоционалном побољшању епизодног памћења је мање јасна. Да бисмо решили овај проблем, користили смо функционални МРИ приступ целог мозга код 1.418 здравих учесника.
Емоција се односи на људска унутрашња осећања и искуства и важан је део људских психолошких активности. Памћење је основна интелектуална способност људских бића. То је процес којим људи добијају информације из прошлих искустава, чувају их и прегледају. Њих двоје играју важну улогу у људским животним активностима и између њих постоји блиска веза.
Веза између емоционалне информације и памћења је веома блиска. Према истраживању, када људи доживе емоционална искуства, они обрађују емоционалне информације дубље и детаљније, чиме се побољшава почетна тачка и снага очувања информација у меморији. То значи да људски мозак лакше памти унутрашње искуство садржано у емоционалном искуству и теже заборавити.
Стога, емоционалне информације такође могу подстаћи људски ентузијазам за учење и стварање. Током емоционалних искустава, људи су осетљивији и радознали у вези са информацијама које добијају, чиме се промовише људско учење и креативност. Истовремено, емоционално искуство такође може стимулисати емоционално изражавање људи и социјалне вештине, чиме се побољшава интимност људских емоционалних односа.
Укратко, однос између емоционалне информације и памћења је неодвојив. Емоционално искуство може промовисати дубоко разумевање информација и меморије, а складиштење меморије може побољшати одговор на емоционално искуство људи и способност емоционалног изражавања. Стога би требало да посветимо више пажње сопственим емоционалним искуствима и покушамо да пронађемо више лепоте и среће у емоционалној комуникацији како бисмо унапредили своје емоције и памћење. Види се да треба побољшати своје памћење. Цистанцхе десертицола може значајно побољшати памћење, јер Цистанцхе десертицола такође може да регулише равнотежу неуротрансмитера, као што је повећање нивоа ацетилхолина и фактора раста. Ове супстанце су веома важне за памћење и учење. Поред тога, месо такође може побољшати проток крви и подстаћи испоруку кисеоника, што може осигурати да мозак добије довољно хранљивих материја и енергије, чиме се побољшава виталност и издржљивост мозга.

Кликните на суплементе да бисте побољшали памћење
Прво смо идентификовали кластере који су значајно активирани током побољшаног меморијског кодирања негативних и позитивних емоционалних слика. Поред добро познатих церебралних региона повезаних са емоционалном меморијом, идентификовали смо кластер у малом мозгу. Затим смо користили динамичко каузално моделирање и идентификовали неколико церебеларних веза са повећаном снагом везе која одговара побољшаној емоционалној меморији, укључујући једну са кластером који покрива амигдалу и хипокампус, и двосмерне везе са кластером који покрива предњи цингуларни кортекс. Садашњи налази указују на то да је мали мозак саставни део мреже укључене у емоционално побољшање епизодног памћења.
Побољшано памћење за емоционално узбудљиве информације је добро познат феномен који има адаптивну вредност у еволуционом смислу, јер је од виталног значаја запамтити и опасне и повољне ситуације (1, 2). Из студија на глодарима, добро је утврђено да емоционално узбуђење доводи до норадренергичке активације амигдале, што заузврат активира хипокампус и друге регионе мозга како би се побољшала консолидација меморије емоционално побуђујућих информација (3–5).
Штавише, постоје докази из људских студија да емоционално узбуђење и норадренергичка активација већ регулишу процесе памћења током кодирања (6–10) и да се снага везе из амигдалато хипокампуса брзо повећава током кодирања емоционално узбудљивих информација у поређењу са неутралним информацијама (11). Осим амигдале и хипокампуса, две мета-анализе студија активације људског мозга коришћењем функционалне МРИ (фМРИ) указале су на потенцијалну релевантност неколико додатних региона мозга појачаног кодирања декларативне меморије емоционалним узбуђењем, укључујући средњи окципитални гирус, средњи фронтални гирус, фусиформ гирус, доњи фронтални гирус, супрамаргинални гирус, орбитофронтални кортекс, паријетални кортекс, клауструм, каудат и инсула (12, 13).
Иако је мали мозак повремено наведен у фМРИ студијама о побољшању емоционалног памћења (14, 15), мета-анализа укључујући 15 студија није га навела (12). Новија мета-анализа која је укључивала 25 студија је показала да је мали мозак значајно активиран, али након што су искључене три студије које нису показале ефекат побољшања понашања, значај је нестао (13). Потенцијални разлози за ову двосмисленост укључују да је мали мозак показао само нивое значајности испод прага у појединачним студијама или да мали мозак а приори није био укључен у анализу (16).
Мали мозак је типично познат по својој важној улози у контроли моторичких функција (17). Међутим, постоје докази да излази малог мозга циљају не само на кортикалне моторичке области, већ и на неколико немоторних кортикалних и субкортикалних региона који су укључени у више функције мозга, укључујући емоције и спознају (18–21), и да сам мали мозак има чврсте репрезентације више мрежа укључених у ове функције (22, 23).
Нарочито је познато из студија на животињама и људима да мали мозак игра важну улогу у условљавању страха (19, 24–27), који се традиционално категорише као несвесни или недекларативни облик учења са јаком емоционалном компонентом (5, 28). Међутим, мање је јасно да ли је мали мозак такође укључен у појачавајући ефекат емоционалног узбуђења на епизодно памћење, декларативни облик памћења који захтева свесно кодирање меморије и омогућава свесно присећање информација заједно са њиховим контекстом (5, 29, 30).
Студије лезија на животињама и људима и студије неуромиџинга на људима показују да условљавање страха и емоционално побољшање епизодног памћења делимично зависе од истих неуронских основа, као што је амигдала (5, 12, 31, 32). Према томе, мали мозак може бити укључен не само у условљавање страха, већ и у емоционално побољшање епизодног памћења. У овој студији смо истражили да ли су мали мозак и церебеларно-церебралне везе укључене у феномен супериорне епизодне меморије која пре емоционално побуђује визуелне информације.

Користили смо фМРИ узорак од 1.418 здравих људи који су извршили задатак кодирања слике који садржи позитивне и негативне емоционалне и неутралне слике, након чега је уследио тест слободног присећања, који процењује епизодно памћење (29, 30), 20 минута након завршетка кодирања. Док је емоционално узбуђење, а не валентност, идентификовано као покретач ефекта истакнутих информација на епизодично памћење које побољшава памћење (5, 33, 34), разлике у вези са валентношћу су такође идентификоване (35).
Овде смо се фокусирали на идентификацију ефеката емоционалног узбуђења који су уобичајени за позитивну и негативну валентност. Велика величина узорка нам је омогућила да поделимо узорак на откриће (н=945 учесника) и узорак репликације (н=473 учесника; погледајте Материјале и методе). Да бисмо измерили неуронске корелате супериорне меморије за емоционалне информације током кодирања, користили смо следећу парадигму емоционалне меморије (12). Ова парадигма процењује разлику између активности кодирања касније успешно опозваних емоционалних ставки у односу на оне непозваних емоционалних ставки, у поређењу са опозваним неутралним ставкама наспрам непозваних неутралних ставки (названих „кодирање побољшане емоционалне меморије“). У почетку смо идентификовали вокселе са значајно повећаном активношћу током побољшаног кодирања емоционалне меморије у узорку открића. Урадили смо ову анализу за цео мозак, укључујући и мали мозак.
Од воксела који су показали повећану активност током побољшаног кодирања емоционалне меморије, дефинисали смо регионе од интереса (РОИ). Дефинисали смо РОИ функционално, а не анатомски, јер се осетљивост откривања присуства веза може повећати коришћењем РОИ-а који одговарају стварним функционалним границама (36). Конкретно, комбиновали смо вокселе са сличним профилом одговора да бисмо створили просторно кохерентне и временски хомогене РОИ коришћењем приступа груписања (37). Затим смо тестирали да ли су идентификовани РОИ показали повећану активност током побољшаног кодирања емоционалне меморије у узорку репликације.
Са реплицираним РОИ (тј. један церебеларни РОИ, 25 церебралних РОИ) коначно смо истражили усмерену ефективну повезаност између малог мозга и церебралних РОИ користећи динамичко каузално моделирање (ДЦМ) (38, 39) у оба узорка. Док је ДЦМ првобитно развијен да би се тестирале специфичне хипотезе у вези са присуством, смером и модулаторима ефикасне повезаности између скупа унапред дефинисаних региона мозга, такође се може применити на истраживачки начин који укључује велики број можданих региона и модела ([40]; видети материјале и методе).
Овде смо применили ДЦМ да истражимо усмерену ефикасну повезаност између малог РОИ и церебралних РОИ укључених у побољшање емоционалне меморије. ДЦМ нам је омогућио да утврдимо 1) да ли је снага тих веза повећана током успешног кодирања емоционалне меморије, и 2) правац ефективне повезаности како бисмо сазнали да ли унос из малог мозга узрочно покреће церебрални РОИ који је умешан у побољшање емоционалне меморије или је правац утицаја обрнуто.

Резултати
Подаци о понашању: Побољшање емоционалне меморије. Резултати понашања у узорцима откривања и репликације показали су да су се учесници слободно сећали више емотивних (позитивних и негативних) слика него неутралних слика (узорак открића, средња разлика: 4,50 ± 2,76 [средња вредност ± СД], Т {{4} }.01, П=7.53 к10-268, н=945; узорак репликације, средња разлика: 4.65 ±2.60 [средња вредност ± СД], Т=38.82, П=7.03 к 10-149, н=473). За детаљан опис података о понашању, погледајте референцу (11). Ово побољшање емоционалне меморије није било значајно повезано са узрастом или полом (П > 0,05; 2-страно).
Активност у вези са побољшаним кодирањем емоционалне меморије.
За контраст који представља побољшано кодирање емоционалне меморије, 7,708 воксела са повећаном активношћу идентификовано је у узорку открића на нивоу целог мозга, коригованих за вишеструка поређења коришћењем процедуре стопе грешака на нивоу породице (ФВЕ) (н { {4}}, Пвхоле-браин-ФВЕ-исправљено < 0.05; Додатак СИ, слика С2 и табела С3). Нисмо приметили значајне позитивне или негативне везе између активности и ефеката пола, старости, промена у софтверу скенера или промена у намотајима градијента (Пвхоле-браин-ФВЕ-исправљено > 0,05).
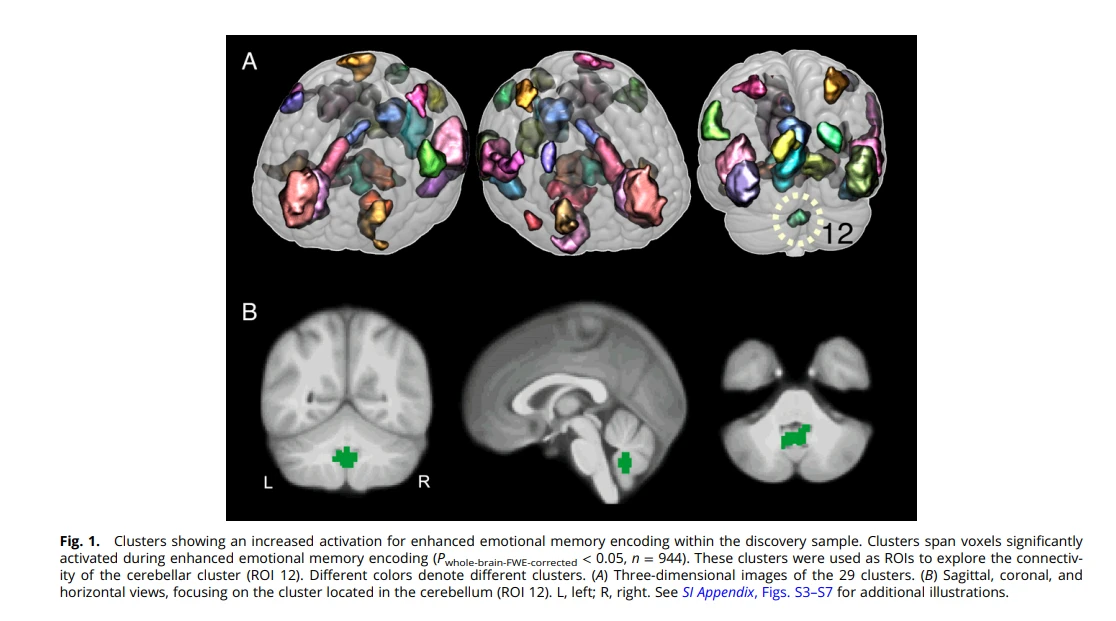
Воксели који се односе на кодирање побољшане демотивне меморије су парцелисани у 30 кластера (тј. РОИ) да би се смањила димензионалност података (Слика 1 и Додатак СИ, Сл. С3–С7, погледајте Материјали и методе за детаље о методи парцелације). Један кластер (РОИ 11) је садржао изоловане вокселе и мале групе воксела који нису били просторно кохерентни и стога су уклоњени из даље анализе.
Од 29 преосталих РОИ, 28 је било лоцирано у неокортикалним и субкортикалним регионима великог мозга, а један је био у малом мозгу (слика 1; видети СИ додатак, табела С5 за детаље о броју воксела као и анатомском кореспондентном перкластеру). Према атласу вероватноће магнетне резонанције (МР) људског малог мозга (41), церебеларни кластер у узорку открића је мапиран углавном на вермис малог мозга (локални максимум за 76% у лобулу ИКС, и за 22% у узорку за његову намену) .
Од 29 РОИ идентификованих у узорку открића, 26 РОИ (укључујући мали мозак) је такође значајно активирано током побољшаног кодирања емоционалне меморије у узорку репликације (праг значаја за максимуме РОИ: Т=4.41, П < {{ 4}}.05, једнострано, Бонферони-исправљено за све значајне вокселе од 29 РОИ идентификованих у узорку открића). Максимум за РОИ 7, 13 и 25 није достигао значај у узорку репликације и стога ови РОИ нису узети у обзир за ДЦМ анализу.
Укратко, реплицирани 26 РОИ су мапирани на окципитални, темпорални, паријетални и фронтални кортекс и амигдалу/хипокампус, цингулат, таламус, мождано стабло и мали мозак (слика 1; СИ додатак, табела С5).
Приметно је да се активност у вези са успешним меморијским кодирањем није значајно разликовала између позитивних и негативних слика у малом мозгу РОИ у узорцима открића и репликације (Пвхоле-браин-ФВЕ-исправљено > 0.05, Псмалл-волуме-цоррецтед > 0,001).
ДЦМ: Јачина везе током побољшаног кодирања емоционалне меморије.
Реплицираних 26 РОИ повезаних са побољшаним кодирањем емоционалне меморије ушло је у ДЦМ анализу. Да бисмо истражили промене у снази везе током побољшаног кодирања емоционалне меморије између малог РОИ и преосталих 25 церебралних РОИ, користили смо серију ДЦМ-ова 2- чворова (церебелум за све остале) да бисмо истражили све везе у пару (двосмерне) (имајте на уму да велики број параметара модела онемогућио је укључивање свих 26 РОИ у један ДЦМ модел).
У оквиру узорка открића, 25 веза (од 50могућих једносмерних веза) показало је повећану снагу током побољшаног кодирања емоционалне меморије (постериорна вероватноћа > 0.99). Узимајући у обзир број тестова, применили смо конзервативни праг вероватноће од 0.99 и реплицирали резултате у независном узорку користећи исти праг (38, 42, 43). Петнаест од 25 веза је такође имало повећану снагу у узорку репликације (постериорна вероватноћа > 0,99) (слика 2 и СИ додатак, слике С8–С10). Од тих 15 реплицираних веза, 11 веза показало је повећану снагу везе од малог мозга до церебралних региона.
Од посебног интереса је јака веза између малог мозга и РОИ 26 која укључује вокселе из амигдале и хипокампуса (слика 2). Четири везе су показале повећану снагу везе од церебралних региона до малог мозга (слика 2). Везе између малог мозга и РОИ 22 које укључују вокселе из ростралантериорног цингуларног РОИ и између малог РОИ и РОИ 9 које садрже вокселе из прецентралног кортекса показале су повећану снагу у оба смера.
Дискусија
Ова студија је имала за циљ да истражи да ли су мали мозак и церебеларно-церебралне везе укључене у феномен супериорног епизодног памћења за емоционално узбудљиве визуелне информације. У првом кораку идентификовали смо кластере који показују повећану активност током побољшаног кодирања емоционалних слика. Церебрални кластери су мапирани на теокципитални, темпорални, паријетални и фронтални кортекс и теамигдалу/хипокампус, цингулат и таламус. Ови резултати активације мозга су углавном у складу са налазима две мета-анализе побољшане емоционалне меморије која кодира нељуде (12, 13) и опсежног експерименталног рада на животињама (4, 32, 44).
Поред ових церебралних региона, пронашли смо чврсте доказе за кластер који се налази углавном унутар вермиса малог мозга који показује повећану активност током кодирања побољшаног емоционалног памћења у два велика узорка. Занимљиво је да се средњи мали мозак активира током призивања епизода емоционалног личног живота, што указује на улогу овог региона у проналажењу емоционалне меморије (21).
Постоји гомила доказа да је мали мозак, посебно церебеларни вермис, кључно укључен у условљавање страха (19, 24, 26, 27). Код глодара је показано да лезије вермиса поништавају условљавање откуцаја срца (45) и да је вермис неопходан за интактно условљавање страха (46). Код људи је пријављено да пацијенти са лезијама церебеларног вермиса показују оштећено стицање брадикардије условљене страхом (47). Штавише, фМРИ студија код здравих учесника открила је да је вермис укључен у класично кондиционирање трептања ока (48).
Вермис има еферентне пројекције на лимбичке регионе, укључујући амигдалу и хипокампус, структуре укључене у кондиционирање одлагања и кондиционирање трагова, респективно (49). Веза вермиса са амигдалом и хипокампусом би такође омогућила утицај вермиса на побољшање епизодних сећања емоционалним узбуђењем, које зависи од обе структуре (5). Налази ове студије заиста указују да вермис није само укључен у условљавању страха, али је такође укључен у феномен супериорног епизодног памћења визуелних информација које емоционално побуђују.
Накнадна анализа повезивања ДЦМ-а показала је да је неколико церебеларно-церебралних веза показало повећану снагу током побољшаног кодирања емоционалне меморије (слика 2), што сугерише да је мали мозак интегрална компонента мреже која је укључена у побољшање емоционалне меморије. Конкретно, пронашли смо 11 веза са повећаном снагом везе од малог мозга до церебралних региона. У контексту побољшаног кодирања емоционалне меморије, чини се да је веза са РОИ која укључује вокселе из амигдале и хипокампуса (РОИ 26) од посебног интереса. Показало се да су церебелум и амигдала функционално међусобно повезани током условљавања страхом (50, 51).
Штавише, студије на пацовима и мачкама показале су да електрична стимулација вермиса (изван контекста учења) модулира (тј., неке јединице су олакшане, а друге инхибиране) активност амигдале и хипокампуса (52, 53), што указује да је вермис функционално повезан са овим лимбицима. региони. Ови налази се уклапају са смером пронађеним у тренутној ДЦМ анализи, указујући на утицај вермиса на РОИ 26. Постоји довољно доказа да су амигдала и хипокампус, као и њихове интеракције, кључно укључени у појачавање ефекта емоционалног узбуђења у једној епизодној меморији ( 4, 5, 11, 54).

Такође смо пронашли доказе за укљученост двосмерних веза малог мозга са РОИ, који је укључивао вокселе из предњег цингуларног кортекса (РОИ 22), у побољшању емоционалне меморије. МРИ студија функционалне повезаности у стању мировања код здравих људи је показала да је цингулат функционално повезан са малим мозгом (23). Штавише, предњи цингулат је повезан са емоцијама, проценом награде и вредносним приказима (55). Претпоставља се да је предњи цингуларни кортекс, поред амигдале и инсуле, фундаментални део велике мреже салиенцета која функционише тако да одваја најрелевантније унутрашње и ванперсоналне стимулусе за вођење понашања (56, 57).
Штавише, пријављено је да се мрежа салиенце активира норадренергичком активацијом (58), системом неуротрансмитера који је кључно укључен не само у процесе узбуђења и пажње, већ и у побољшање емоционалне меморије (59). Занимљиво је да је лоцус цоерулеус, главно место за синтезу мозга норепинефрин, такође се пројицира у области широм малог мозга (60). Тек треба да се утврди да ли се мали мозак активира директно од стране лоцус цоерулеуса или индиректно преко мреже салиенце.

Штавише, пронашли смо двосмерну везу малог мозга са РОИ у фронталном кортексу (углавном прецентралном) што може бити повезано са регулацијом моторичких функција (61), вероватно моторичким учењем, у контексту побољшања емоционалне меморије. Коначно, пронашли смо везе са повећаном снагом везе од два церебрална РОИ-а до малог мозга (тј. РОИ 10, укључујући вокселе из лингвалног и перикалкариног гируса, и РОИ 23, укључујући вокселе из латералног окципиталног кортекса).
For more information:1950477648nn@gmail.com