Фенилетанол гликозиди из Херба Цистанцхе побољшавају микроокружење хипоксичног тумора и појачавају ефекте оксалиплатина преко ХИФ-1 сигналног пута
Mar 05, 2022
Контакт: Аудреи Ху Вхатсапп/хп: 0086 13880143964 Е-пошта:audrey.hu@wecistanche.com
ЛИМЕИ ВЕН, ЈУНПИНГ ХУ, ЈИАВЕИ ЗХАНГ и ЈИАНХУА ИАНГ
Апстрактан.
Рак јетре је један од најчешћих врста малигних тумора и карактерише га висока малигност, брза прогресија, висок морбидитет и морталитет. Пријављено је да оксалиплатин (ОКСА) има изражену ефикасност против узнапредовалог рака јетре са подношљивом токсичношћу. Код солидних тумора, хипоксично микроокружење промовише епително-мезенхимску транзицију (ЕМТ), што такође може да изазове резистенцију рака јетре на лекове платине. ХербаЦистанцхе (Цистанцхе тубулоса) се често користи у традиционалној кинеској медицини и фенилетаноидни гликозиди из ХербеЦистанцхе(ЦПхГ) су главне активне компоненте. Ова студија је имала за циљ да истражи ефекте ЦПхГ на одрживост, апоптозу, миграцију и инвазију ћелија рака јетре. ХепГ2 ћелије рака јетре подељене су у контролне групе, ДМСО, ЦоЦл2, ОКСА, ОКСА плус ЦоЦл2 и ЦПхГс плус ОКСА плус ЦоЦл2. Након тога, обављени су квантитативна ПЦР реверзна транскрипција и Вестерн блот анализа да би се одредили нивои експресије фактора 1 индукованог хипоксијом (ХИФ-1), лизил оксидазе 2 (ЛОКСЛ2) и гена и протеина повезаних са ЕМТ (тј. Е -цадхерин и Твист), како би се истражили ефекти ЦПхГ на рак јетре. Резултати су показали да ЦПхГ могу побољшати ефекте ОКСА на рак јетре и инхибирати миграцију, инвазију и апоптотичку брзину ћелија рака јетре. Поред тога, третман ЦПхГс ефикасно је индуковао смањење регулације ХИФ-1, ЛОКСЛ2 и Твист-а и повећање регулације Е-кадхерина. Садашњи налази су показали да ЦПхГ изазивају значајно повећање осетљивости на ОКСА и супресију ЕМТ изазваног хипоксијом у јетри

цистанцхе корист: анти-Рак јетре
Увод
Liver cancer is a malignant tumor that usually involves the digestive system, and consists of primary and secondary types. Primary liver cancer is divided into hepatocellular carcinoma and intrahepatic cholangiocarcinoma (1,2). Notably, liver cancer is associated with a high incidence and mortality rate worldwide (3). According to the World Health Organization, it is predicted that there will be >1,000,000 смртних случајева од рака јетре до 2030. године, а од новопотврђених случајева, они у континенталној Кини ће чинити 46,6 процената.
Пријављено је да оксалиплатин (ОКСА) испољава инхибиторне ефекте на раст рака јетре са подношљивом токсичношћу у клиничким условима. Ипак, укупна ефикасност терапије лековима на бази платине омета резистенција туморских ћелија (4). Добро је познато да рак јетре показује мању осетљивост на хемотерапију у поређењу са другим врстама рака. Вишеструка резистенција рака јетре допринела је његовој резистенцији на бројне терапеутске агенсе (5). У претходној студији, Ксие и Зхонг (6) су известили да су ХепГ2 ћелије показале слабу осетљивост на адриамицин, 5-флуороурацил и цисплатин у условима хипоксије. Упркос чињеници да су хемотерапијски агенси на бази платине главне опције лечења рака, отпорност на ове лекове постоји међу пацијентима. Штавише, прогноза пацијената са карциномом јетре остаје лоша (7,8). До данас су уложени велики напори да се испита резистенција на лекове и да се побољша осетљивост на лекове код пацијената са раком јетре.
У условима хипоксије долази до реваскуларизације у ћелијама рака, што може довести до епително-мезенхималне транзиције (ЕМТ) и васкуларне мимикрије (ВМ). ЕМТ и ВМ могу накнадно промовисати инвазију и удаљене метастазе. Штавише, спекулише се да ЕМТ служи као покретачка снага за прогресију рака (9). Поред тога, фактори изазвани хипоксијом (ХИФ) су укључени у формирање неосула, енергетски метаболизам, ћелијску пролиферацију, инвазију и метастазе (10).
Протеин 2 (ЛОКСЛ2) сличан лизил оксидази (ЛОКС) је члан породице ЛОКС и уско је повезан са ковалентним унакрсним повезивањем колагена и еластина, што може довести до фиброзе и кључно је за интегритет екстрацелуларног матрикса ( 11). У претходној студији, сматрало се да је ЛОКСЛ2 блиско повезан са метастазама ћелија рака (12). Штавише, показало се да ЛОКСЛ2 модулира патогенезу и прогресију бројних врста малигних карцинома кроз екстра- и интрацелуларне путеве, што су били важни индекси за процену лоше прогнозе (13,14).Херба Цистанцхеје тоник биљка која се обично дистрибуира у пустињским регионима, која се често користи у традиционалној кинеској медицини (15,16).Цистанцхе тубулоса(Ц. тубулоса)је природни биљни лек који се обично сади у аутономном региону Синђанг. Фенилетаноидни гликозиди из Херба Цистанцхе (ЦПхГс) служе као једна од главних активних компоненти Херба Цистанцхе. Раније су Ху и сарадници (17) указали да ЦПхГ могу ублажити повреду јетре код мишева који носе тумор Х22 и инхибирати раст ћелија рака. Предложено је да основни механизам може бити повезан са смањењем серумског фетопротеина и да може побољшати имунитет код мишева.
У овој студији, хипоксични модел ћелија рака јетре ХепГ2 индукован је коришћењем ЦоЦл2. На основу тога, ова студија је имала за циљ да истражи ефекте ОКСА на пролиферацију, апоптозу, миграцију и инвазију ћелија рака у присуству ЦПхГ у хипоксичним условима. Поред тога, откривени су нивои експресије мРНА и протеина ХИФ-1, ЛОКСЛ2, Е-цадхерина и Твиста. Штавише, истражени су тачни механизми који леже у основи ефеката ЦПхГ на патогенезу рака јетре.

корист екстракта цистанцхе: лечење рака јетре
материјали и методе
Ћелијска линија. Ћелијска линија рака јетре ХепГ2, идентификована применом СТР методе, обезбедила је Институција за клиничка истраживања, Прва придружена болница Медицинског универзитета Синђианг (Урумћи, Кина). Ћелије су култивисане у високоглукозном ДМЕМ (ХиЦлоне; Цитива) који садржи 10 процената феталног говеђег серума (ФБС; Хицлоне; Цитива) на 37°Ц у инкубатору који садржи 5 процената ЦО2.
Preparation of CPhGs. C. tubulosa extraction (CPhGs) was obtained from Hetian Dichen Biotech Co., Ltd.. The content of CPhGs was >80 одсто, међу којима је садржај ехинакозида 44,5 и вербаскозе 16,1 одсто. Стабљике Ц. тубулоса (Сцхренк) Вигхт сакупљене су у октобру 2016. из Синђијанга, Кина. Биљку је идентификовао др Јунпинг Ху. Сви ови узорци ваучера (бр. 201610) депоновани су у Хербаријуму биљака, Фармацеутски факултет, Медицински универзитет у Синђангу, Синђанг, Кина.
Експериментални дизајн. ХепГ2 ћелије (5к104/мл) су третиране различитим концентрацијама ЦПхГс (5, 25, 50, 100, 200 и 500 µг/мл) током 48 х на 37˚Ц (24 х након сејања) за скрининг дозе ЦПхГс‑Л/М/Х. ХепГ2 ћелије (5к104/мл) подељене су у следеће групе: и) Контролна група, култивисана у ДМЕМ са високим садржајем глукозе; ии) ДМСО група, култивисана у 0,1% ДМСО (в/в); иии) ЦоЦл2 група (моделна група хипоксије), култивисана у ДМЕМ без серума који садржи 100 µМ ЦоЦл2; ив) ОКСА
група (позитивна контролна група), култивисана у 5 уМ ОКСА (Беијинг Солар Сциенце & Тецхнологи Цо., Лтд.); в) ОКСА плус ЦоЦл2 група, култивисана у 5 µМ ОКСА у комбинацији са 100 µМ ЦоЦл2; и ви) ЦПхГс групе, третиране са ЦПхГс‑Л/М/Х (25, 50 и 100 µг/мл, респективно) у комбинацији са 5 µМ ОКСА и 100 µМ ЦоЦл2.
Тест виталности ћелија. Вијабилност ћелија је одређена коришћењем Целл Цоунтинг Кит-8 (ЦЦК-8) теста према упутствима произвођача (Беијинг Солар Сциенце & Тецхнологи Цо., Лтд.) и као што је претходно описано (18). Ћелије (2.0к103 ћелије/бунарић) су засејане у плоче са 96 бунарчића. Након тога, ~24 х након сејања, ћелије су третиране 48 х у складу са условима третмана у свакој групи. Медијум је затим замењен са 100 µл ДМЕМ са високим садржајем глукозе, након чега је додат 10 µл ЦЦК-8 реагенса; ћелије су инкубиране 1 х на 37˚Ц. Оптичка густина је мерена коришћењем читача микроплоча са више детекција (Тхермо Фисхер Сциентифиц, Инц.) на 450 нм. Припремљено је шест понављања за сваки услов.
Одређивање брзине апоптозе. Стопа апоптозе је одређена коришћењем Аннекин В/ПИ апоптотичког комплета за детекцију (Беијинг Солар Сциенце & Тецхнологи Цо., Лтд.). ХепГ2 ћелије (5к105) су инокулисане у плоче са 6 јажица на 37˚Ц у 5% ЦО2. Након тога, ~ 24 х након третмана, ћелије су култивисане у ДМЕМ-у без серума током 4 х. Ћелије су затим дигестиране коришћењем 0,25 процената трипсинизованог (Гибцо; Тхермо Фисхер Сциентифиц, Инц.), након чега су уследила најмање три испирања са претходно охлађеним ПБС. Након центрифугирања на 167,7 кг током 5 минута на 4˚Ц, ћелије су ресуспендоване са 1Кс пуфером за везивање и концентрација је подешена на 1~5к106/мл, а затим обојена са 5 µл Анексина В-ФИТЦ и 5 µл ПИ током 15 мин. на собној температури. Ћелије су затим подвргнуте проточној цитометрији користећи БД ЛСРФортесса проточни цитометар (БД Биосциенцес) и ФловЈо
10.6.2 софтвер (Трее Стар, Инц.).
Тест зарастања рана. Инхибицијски ефекти ЦПхГ-а на миграцију ћелија испитани су тестом зарастања рана (19). Ћелије су засејане у плоче са 6 бунарчића док се не добије 1{{4}0 посто конфлуентног монослоја. Након тога, ћелије су рањене коришћењем врха пипете од 200 µл, испране ПБС-ом и инкубиране са третманима у медијуму без серума. Након третмана лековима, брзина зарастања ране је мерена на 0, 12, 24 и 48 х, респективно. Слике ране су добијене коришћењем флуоресцентног микроскопа (Никон Ти‑С, Јапан) под увећањем од к10. Затварање ране је мерено растојањем ране у сваком периоду и изражено као проценат почетне удаљености ране у 0 х.
Трансвелл тестови. Инвазија ћелија је процењена Трансвелл тестовима. Ћелије (1к105 ћелија/мл) су суспендоване у 200 µл ДМЕМ високе глукозе без ФБС. Ћелије су затим засејане на горње бунарчиће обложене Матригелом прекривене полиетилен терефталатном филтер мембраном (величина пора, 8,0 µм). Укупно 500 µл ДМЕМ са високим садржајем глукозе који садржи 10 процената ФБС стављено је у доњу комору. Памучни штапићи су коришћени за уклањање ћелија на горњој површини филтера након 48 х на 37˚Ц. Ћелије које су продрле кроз мембрану су фиксиране са 4 процента параформалдехида током 30 минута. Након тога, ћелије су обојене са 0,1 посто кристално љубичасте боје током 15 минута на собној температури. Инвазивне ћелије су примећене под флуоресцентним микроскопом (Никон Ти‑С) при увећању од к100.

Квантитативни ПЦР реверзне транскрипције (РТ-кПЦР). Укупна РНК је екстрахована из ХепГ2 ћелија коришћењем ТРИзол® реагенса (Инвитроген; Тхермо Фисхер Сциентифиц, Инц.), а синтеза цДНК је изведена коришћењем ПримеСцрипт РТ комплета реагенса (Такара Био, Инц.) према протоколу произвођача. кПЦР је изведен на 7500 ПЦР систему у реалном времену (Апплиед Биосистемс; Тхермо Фисхер Сциентифиц, Инц.) коришћењем ТБ греен™ Премик Ек Так™ (Такара Био, Инц.) према протоколу произвођача. Прајмери који се користе за кПЦР су наведени у Табели И. ПЦР услови су се састојали од денатурације на 95°Ц током 30 секунди, након чега је уследило 40 циклуса денатурације на 95°Ц током 5 секунди и жарења на 60°Ц током 30 секунди. Коначно, резултати амплификације су анализирани методом 2‑ΔΔЦк (20).
Вестерн блот анализа. Протеини су екстраховани из ћелија третираних 48 х хомогенизацијом у РИПА пуферу за лизу (Тхермо Фисхер Сциентифиц, Инц.) који садржи инхибиторе протеазе и фосфатазе. Садржај ћелијских протеина је одређен БЦА методом. Протеини (40 µг) су затим раздвојени помоћу СДС-ПАГЕ на 10-постотном гелу и пребачени на ПВДФ мембрану. Мембрана је блокирана у 5% немасног млека 1 х на 4˚Ц и инкубирана са следећим примарним антителима: ‑актин (1:5,000; кат. бр. бс‑0061Р; БИОСС), ХИФ ‑1 (1:1,000; кат. бр. аб179483; Абцам), ЛОКСЛ2 (1:500; кат. бр. аб179810; Абцам), Е-кадхерин (1:1,000 ; кат. бр. бс‑10009Р; БИОСС) и Твист1 (1:500; кат. бр. бс‑2441Р; БИОСС) преко ноћи на 4˚Ц. Мембрана је затим инкубирана са козјим анти-зечјим ИгГ Х&Л секундарним антителима (1:2,000; кат. бр. аб205718; Абцам) 4 х на собној температури. Након испирања са ТБС-0,05 процената Твеен-20, мрље су визуелизоване коришћењем система побољшане хемилуминисценције (Амерсхам; Цитива). Релативни интензитет трака је полуквантификован дензитометријском анализом коришћењем софтвера ИмагеЈ2к (верзија 2.1.4.7; Равак Софтваре Инц.), а дензитометријски дијаграми резултата су нормализовани на интензитет ‑актина.
Статистичка анализа. За анализу података је коришћен софтвер СПСС 19.0 (СПСС, Инц.). Подаци су представљени као средња вредност ± стандардна девијација и анализирани су једносмерном АНОВА након чега је уследио Тукеијев пост хоц тест. П<0.05 was="">сматра се да указује на статистички значајну разлику. Сви експерименти су изведени најмање у три примерка.

Резултати
Ефекти ЦПхГ на виталност ћелија. ХепГ2 ћелије су третиране различитим концентрацијама ЦПхГс (5, 25, 50, 100, 200 и 500 µг/мл) током 48 х (24 х после сејања). Као што је приказано на слици 1, дошло је до значајног пада виталности ћелија третираних са 200 и 500 µг/мл ЦПхГс у поређењу са контролном групом (П<0.05). these="" findings="" indicated="" that="" cphgs="" could="" modulate="" cell="" viability="" in="" a="" dose‑dependent="">
ЦПхГ појачавају ефекте ОКСА на рак јетре. Након тога су процењени ефекти ЦПхГ на виталност ћелија ХепГ2 модулисаних ОКСА (слика 2). Након ~48 х, комбинација ЦПхГ и ОКСА значајно је смањила одрживост ХепГ2 ћелија у поређењу са оним у ОКСА плусЦоЦл2 група. Конкретно, ЦПхГс‑М плус ОКСА плус ЦоЦл2 и ЦПхГс‑Х плус ОКСА плус ЦоЦл2 значајно су инхибирали виталност ХепГ2 ћелија у поређењу са ОКСА плус ЦоЦл2 групом (П<0.05 and=""><0.01,>

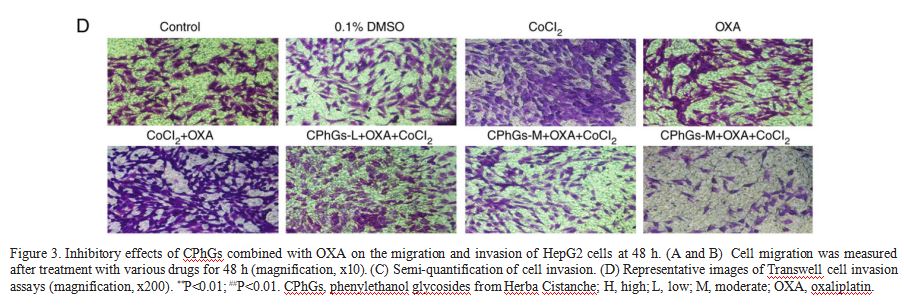
ЦПхГ инхибирају миграцију и инвазију ћелија рака јетре. Да би се даље проучавао инвазивни потенцијал и миграциона способност ћелија рака јетре након третмана са ЦПхГс и ОКСА, извршени су тестови зарастања рана и Трансвелл. Тест зарастања рана је показао да је, у поређењу са оним у ДМСО групи, миграција ХепГ2 ћелија смањена након третмана са ЦоЦл2, ОКСА и ЦПхГс (200 или 500 µг/мл) (П<0.05; fig.="" 3a="" and="" b).="" for="" the="" transwell="" assay,="" the="" invasive="" ability="" of="" cells="" was="" markedly="" inhibited="" in="" the="" co-treatment="" groups="" (cphgs="" +="" oxa="" +="" cocl2)="" compared="" with="" that="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 3c="" and="" d).="" conversely,="" in="" the="" co‑treatment="" groups="" (cphgs="" +="" oxa="" +="" cocl2),="" the="" invasive="" potential="" and="" migratory="" ability="" of="" cells="" was="" markedly="">
Ефекти ЦПхГ и ОКСА на апоптозу. Након третмана комбинацијом ЦПхГ и ОКСА за
48 х, ХепГ2 ћелије су обојене анексином В-ФИТЦ и ПИ, након чега је уследила проточна цитометрија да би се одредила ћелијска апоптоза. Као што је приказано на слици 4А, групе за ко-третман (ЦПхГс-Л/М/Х плус ОКСА плус ЦоЦл2) показале су постепено повећање удела апоптотичких ћелија са повећањем концентрације ЦПхГс. Већина ћелија третираних ЦПхГс и ОКСА локализована је у К4 региону, што указује да је комбинација ЦПхГс и ОКСА изазвала апоптозу у раној фази. У поређењу са групом ОКСА плус ЦоЦл2, значајно повећање апоптотске стопе ћелија је откривено у групама третираним ОКСА, ЦоЦл2 и умереним или високим дозама ЦПхГс (П<0.01; fig.="" 4b).="" these="" findings="" indicated="" that="" the="" combination="" of="" oxa="" and="" cphgs="" may="" contribute="" to="" the="" apoptosis="" of="" hepg2="">
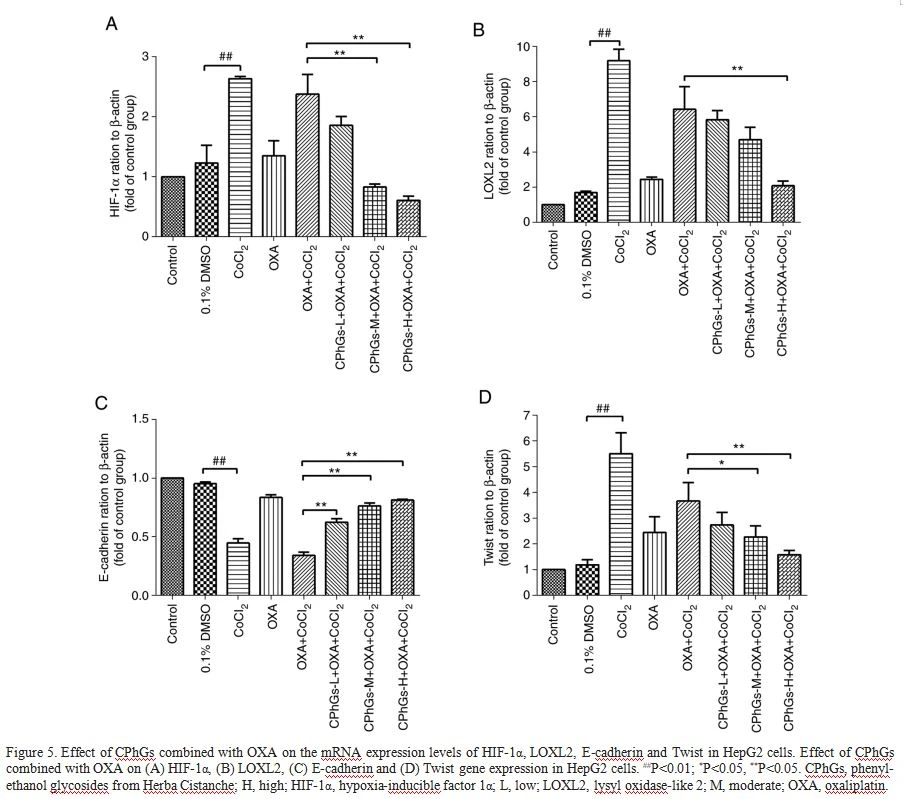
mRNA expression levels of HIF‑1α, LOXL2, E‑cadherin and Twist following CPhGs and OXA co‑incubation. There were no statistical differences in the mRNA expression levels of HIF‑1α, LOXL2, E‑cadherin and Twist between the control and DMSO groups (P>0.05; Слика 5А‑Д). Супротно томе, ЦоЦл2 је изазвао значајно повећање нивоа експресије мРНА за ЛОКСЛ2, ХИФ-1 и Твист у поређењу са онима у ДМСОгрупа (П<0.01; fig.="" 5a,="" b="" and="" d).="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group,="" the="" mrna="" expression="" levels="" of="" loxl2,="" hif‑1α="" and="" twist="" were="" significantly="" enhanced="" in="" the="" cphgs‑h="" +="" oxa="" +="" cocl2="" groups=""><0.01; fig.="" 5a,="" b="" and="" d).="" by="" contrast,="" cocl2="" induced="" a="" significant="" downregulation="" in="" the="" mrna="" expression="" levels="" of="" e‑cadherin="" compared="" with="" those="" in="" the="" dmso="" group=""><0.01; fig.="" 5c).="" all="" concentrations="" of="" cphgs="" combined="" with="" oxa="" and="" cocl2="" were="" able="" to="" upregulate="" the="" mrna="" expression="" levels="" of="" e‑cadherin="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 5c).="" these="" results="" indicated="" that="" the="" combination="" of="" cphgs="" and="" oxa="" effectively="" inhibited="" the="" emt="" under="" hypoxic="">

Нивои експресије протеина ХИФ-1, ЛОКСЛ2, Е-цадхерин и Твист након коинкубације ЦПхГ и ОКСА. Резултати вестерн блотинга су открили да су нивои експресије протеина ХИФ-1, ЛОКСЛ2 и Твист повећани под хипоксичним условима у поређењу са онима у ДМСО групи. За разлику од тога,
нивои експресије протеина Е-кадхерина су смањени у условима хипоксије (П<0.01; fig.="" 6a="" and="" b).="" notably,="" the="" protein="" expression="" levels="" of="" hif‑1α,="" loxl2,="" and="" twist="" were="" significantly="" decreased="" in="" the="" cphgs‑m="" +="" oxa="" +="" cocl2="" or="" cphgs‑h="" +="" oxa="" +="" cocl2="" groups="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 6a="" and="" b).="" compared="" with="" dmso="" group,="" cocl2="" treatment="" significantly="" decreased="" the="" expression="" level="" of="" e‑cadherin.="" in="" the="" cphgs="" groups,="" the="" protein="" expression="" levels="" of="" e‑cadherin="" were="" significantly="" increased="" compared="" with="" those="" in="" the="" oxa="" +="" cocl2="" group=""><0.01; fig.="" 6b).="" these="" findings="" indicated="" that="" cphgs="" treatment="" could="" effectively="" inhibit="" the="" downregulation="" of="" e‑cadherin,="" and="" the="" upregulation="" of="" hif‑1α,="" loxl2="" and="" twist="" induced="" by="">
Дискусија
Хипоксија је уобичајена карактеристика у микроокружењу рака; ово је углавном повезано са чињеницом да је пролиферацијаћелије рака су бржи у поређењу са васкуларним формирањем аберантних новосуђа. Поред тога, хипоксија утиче на друге биолошке процесе, укључујући пролиферацију, метастазе и осетљивост на лекове (21). Хипоксично микроокружење тумора је кључно за патогенезу и прогресију канцера, а значајно је и у резистенцији на лекове и васкуларизацији карцинома јетре (22).
У овој студији, ХепГ2 ћелије су третиране различитим концентрацијама ЦПхГ, међу којима ЦПхГ (200 µг/мл) могу значајно да изазову смањење виталности ћелија. Посебно, ЦПхГ-ови могу модулирати ћелијску одрживост на начин који зависи од дозе. У условима хипоксије, комбинација ОКСА и ЦПхГс (50 или 100 µг/мл) значајно је инхибирала виталност ХепГ2 ћелија у поређењу са само ОКСА третманом. Сличан тренд зависан од дозе примећен је у тестовима миграције и инвазије ћелија рака јетре. Тренутно су спроведене опсежне студије како би се истражила улога апоптозе ћелија рака у патогенези болести јетре (23-26). Развијено је неколико стратегија за лечење рака јетре промовисањем апоптозе (27-29); дакле, мешање у
Апоптоза ХепГ2 ћелија може послужити као обећавајући кандидат за превенцију и лечење рака јетре. Апоптоза ХепГ2 ћелија је значајно побољшана након третмана комбинацијом ЦПхГс‑М/‑Х и ОКСА у поређењу са оном у ћелијама третираним само ОКСА. Стога је назначено да ЦПхГ могу значајно повећати антитуморске ефекте ОКСА.
ХИФ-1 може повећати нивое експресије Е-кадхерина, Н-кадхерина и Виментина, као и неких транскрипционих фактора, као што су Снаил1/2, Зеб1 и Твист1. Последично, ово може довести до губитка ћелијског поларитета, лабављења спојева ћелија и ћелија, промена у протеину цитоскелета и миграције и инвазије ћелија рака, што може довести до транслокације ћелија рака у циркулаторни систем кроз базиларну мембрану. и касније метастазе (30). У овој студији, ЦоЦл2 је коришћен да изазове модел хипоксије, који је покренуо повећање виталности ХепГ2 ћелија, као и миграцију и инвазију ћелија. Штавише, нивои експресије мРНА и протеина ХИФ-1 су значајно повећани, што указује да је ЦоЦл2 индуковао стварање

хипоксично микроокружење. Третман комбинацијом ЦПхГ и ОКСА значајно је инхибирао нивое експресије мРНА и протеина ХИФ-1 изазване хипоксијом. Ови налази сугеришу да би ЦПхГ-ови могли да ослабе микроокружење рака јетре на начин који зависи од дозе.
Е-кадхерин је адхезиони молекул зависан од Ца2 плус, који има кључну улогу у адхезији ћелије и ћелије, одржавању интегритета структуре ткива и преносу сигнала. У случајевима смањене регулације или чак губитка адхезионе функције, ћелије рака могу да испоље неконтролисану пролиферацију и дедиференцијацију, што може да подстакне повећану инвазију ћелија рака и накнадне метастазе (31). Поред тога, Е-кадхерин је кључан за инхибицију ЕМТ ћелија рака, што је уско повезано са диференцијацијом, инвазијом, метастазама и прогнозом вишеструких малигних тумора епитела. Транскрипциони фактори који индукују ЕМТ (ЕМТ-ТФ), као што су Твист, Пуж и Зеб, кључни су за ЕМТ. Пријављено је да хипоксија активира сигналне путеве који индукују експресију ЕМТ-ТФ; нарочито, могао би директно да промовише ЕМТ путем транскрипционе активације ових фактора (32). Твист је високо очувана спирала-прстен-хеликс
транскрипциони фактор који је недавно идентификован последњих година. Висока експресија Твист-а је откривена у бројним типовима ћелија рака (33). Због тога је неопходно истражити повезаност између Твист експресије и миграције или метастазе ћелија рака, као и клиничке превенције и лечења метастаза (34). У овој студији је откривено да су нивои експресије мРНК и протеина Е-кадхерина смањени у присуству хипоксије, док су нивои експресије мРНК и протеина Твист-а били повишени. Ови налази су били у складу са резултатима тестова инвазије и миграције, што је имплицирало да хипоксија може допринети појави ЕМТ. Након третмана са ОКСА, нивои експресије протеина Е-кадхерина су смањени; ово указује да је ОКСА показала слабу ефикасност у инхибицији раста ћелија рака јетре, док би могла да промовише ЕМТ. Међутим, у комбинацији са ЦПхГс, осетљивост ХепГ2 ћелија на ОКСА показала је значајно побољшање у присуству хипоксије. Штавише, заједнички третман са ЦПхГс и ОКСА може инхибирати ћелијску одрживост, миграцију и инвазију ћелија ХепГ2. Ова студија је само открила
Твист и експресија Е-кадхерина; стога, будуће студије имају за циљ да се фокусирају на више маркера везаних за ЕМТ, како би се проценио инхибиторни ефекат ЦПхГ на ЕМТ изазван хипоксијом код рака јетре.
Пријављено је да ХИФ-1 промовише експресију ЛОКСЛ2 и да појачава миграцију и инвазију ћелија рака јетре, што може бити уско повезано са лошом прогнозом рака јетре (30). У претходној студији, нивои експресије ЛОКСЛ2 у суседним ткивима рака јетре су значајно повећани у поређењу са онима у ткивима рака (35). Поред тога, био је уско повезан са инвазијом и метастазама рака јетре. Утишавање гена ЛОКСЛ2 малом интерферирајућом РНК инхибирала је пролиферацију ХепГ2 и СМЦЦ-7721 ћелија, што је резултирало заустављањем ћелијског циклуса ћелија рака и повећаном апоптозом (36). Схао и сарадници (35) су истраживали корелацију између ЛОКСЛ2 у узорцима рака јетре и клиничкопатолошких фактора, ВМ и прогнозе међу 201 случајем који је оперисан ради лечења. Претпоставља се да је ЛОКСЛ2 имао важну улогу у патогенези и прогресији рака јетре, што може послужити као мета за развој лекова. Штавише, Пенг и сарадници (37) су показали да ЛОКСЛ2 може да активира сигналне путеве пужева/Е-кадхерина и Срц киназе/фокалне адхезионе киназе, што може допринети патогенези и прогресији ЕМТ ћелија рака желуца. У овој студији, у условима хипоксије, нивои експресије мРНА и протеина ЛОКСЛ2 су повећани, док је његова експресија смањена након третмана са ОКСА. Штавише, третман комбинацијом ЦПхГ и ОКСА резултирао је очигледном смањењем експресије ЛОКСЛ2, што може ефикасно помоћи антитуморским ефектима ОКСА на рак јетре.
Постоје нека ограничења за ову студију. Ова студија је требало да користи још две ћелијске линије рака јетре, укључујући ћелијску линију СМЦЦ-7721, али оне нису могле да се користе јер није било могуће купити ове ћелијске линије јер су погрешно идентификоване и изведене су из ХеЛа ћелија. Поред тога, ова студија није анализирала антиоксидативне ефекте различитих концентрација ЦПхГ у ћелијама.
Закључно, ЦПхГ би могли да мењају микроокружење хипоксичног тумора ћелија рака јетре кроз модулацију ХИФ-1 сигналног пута. Поред тога, осетљивост ћелија рака јетре на ОКСА је значајно повећана као одговор на лечење комбинацијом ЦПхГ и ОКСА. Ови налази могу пружити нову стратегију лечења за побољшање осетљивости рака јетре на хемотерапију.

Признања
Није применљиво.
Финансирање
Ова студија је подржана од стране Ксињиангове кључне лабораторије за природне активне компоненте лекова и технологију ослобађања лекова (грант бр. КСЈДКС1713), пројекат резервног кандидата за лидера научних и технолошких иновација у аутономном региону Ксињианг Уигур (грант бр. 2019КСС1). Национална фондација за природне науке Кине (грант бр. 81860735) и Бетхуне Цхаритабле
Фондација „Бетхуне·Куест-изградња капацитета за фармацеутско научно истраживање“ (грант бр. Б‑19‑Х‑20200622).
Доступност података и материјала
Скупови података који су коришћени и/или анализирани током текуће студије доступни су од одговарајућег аутора на разуман захтев.
Прилози аутора
ЛМВ и ЈВЗ су извршили експерименте, израдили рукопис и потврдили аутентичност свих сирових података. ЈПХ и ЈХИ дизајнирали су ову студију. Сви аутори су прочитали и одобрили коначни рукопис.
Етичко одобрење и сагласност за учешће
Није применљиво.
Сагласност пацијената за објављивање
Није применљиво.
Такмичарски интереси
Аутори изјављују да немају супротстављене интересе.
Референце
1. Хепатоцелуларни карцином. Нат Рев Дис Примерс 2: 16019, 2016.
2. Гинголд ЈА, Зху Д, Лее ДФ, Касеб А и Цхен Ј: Геномско профилисање и метаболичка хомеостаза код примарних карцинома јетре. Трендови Мол Мед 24: 395‑411, 2018.
3. МцГуире С: Светски извештај о раку 2014. Женева, Швајцарска: Светска здравствена организација, међународна агенција за истраживање рака, СЗО штампа, 2015. Адв Нутр 7: 418‑419, 2016.
4. Гхоламреза К, Јадиди-Ниарагх Ф, Јахроми АС, Занди К и Хојјат-Фарсанги М: Механизми отпорности туморских ћелија на тренутне агенсе циљане терапије. Тумор Биол 37: 10021-10039, 2016.
5. Донг Кс и Мумпер РЈ: Наномедицинске стратегије за лечење тумора резистентних на више лекова: Тренутни напредак. Наномедицина (Лонд) 5: 597‑615, 2010.
6. Ксие И и Зхонг ДВ: АЕГ-1 је повезан са хеморезистенцијом хепатоцелуларног карцинома изазваном хипоксијом путем регулације ПИ3К/АКТ/ХИФ-1алфа/МДР-1 пута. ЕКСЦЛ Ј 15: 745‑757, 2016.
7. Ксионг Х, Ни З, Хе Ј, Јианг С, Ли Кс, Хе Ј, Гонг В, Зхенг Л, Цхен С, Ли Б, ет ал: ЛнцРНА ХУЛЦ покреће аутофагију путем стабилизације Сирт1 и смањује хемоосетљивост ћелија ХЦЦ. Онцогене 36: 3528-3540, 2017.
8. Гаде ТПФ, Туцкер Е, Наказава МС, Хунт СЈ, Вонг В, Кроцк Б, Вебер ЦН, Надолски ГЈ, Цларк ТВИ, Соулен МЦ, ет ал: Исхемија индукује мировање и зависност од аутофагије код хепатоцелуларног карцинома. Радиологија 283: 702‑710, 2017.
9. Сиегел РЛ, Миллер КД и Јемал А: Статистика рака, 2017. ЦА Цанцер Ј Цлин 67: 7-30, 2017.
10. Донг ЛК, Схен БК и Ма И: Напредак истраживања микроокружења хипоксије код хепатоцелуларног карцинома. Зхонг Гуо Пу Ваи Ји Цху Иу Лин Цхуанг За Зхи 25: 1254‑1258, 2018 (на кинеском).
11. Моон ХЈ, Финнеи Ј, Роннебаум Т, анд Муре М: Хуман лисил окидасе-лике 2. Биоорг Цхем 57: 231-241, 2014.
12. Ферреира С, Сараива Н, Ријо П и Фернандес АС: ЛОКСЛ2 инхибитори и прогресија рака дојке. Антиоксиданси (Базел) 10: 312, 2021.
13. Пхилп ЦЈ, Сиебеке И, Цлементс Д, Миллер С, Хабгоод А, Јохн АЕ, Наваратнам В, Хуббард РБ, Јенкинс Г и Јохнсон СР: Унакрсно повезивање екстрацелуларног матрикса побољшава раст фибробласта и штити од протеолизе матрикса у фибрози плућа. Ам Ј Респир Целл Мол Биол 58: 594‑603, 2018.
14. Галван ЈА, Злобец И, Вартенберг М, Лугли А, Глоор Б, Перрен А и Карамитопоулоу Е: Експресија репресора Е-кадхерина СНАИЛ, ЗЕБ1 и ЗЕБ2 туморским и стромалним ћелијама утиче на фенотип пупања тумора и сугерише хетерогеност стромалне ћелије код рака панкреаса. Бр Ј Рак 112: 1944-1950, 2015.
15. Гу Ц, Ианг Кс и Хуанг Л: Цистанцхес херба: Преглед неурофармакологије. Фронт Пхармацол 7: 289, 2016.
16. Фу З, Фан Кс, Ванг Кс и Гао Кс: Цистанцхес Херба: Преглед његове хемије, фармакологије и фармакокинетике. Ј Етхнопхармацол 219: 233‑247, 2018.
17. Ху К, Иоу СП, Лиу Т, Ванг Б, Лиу Кс и Јианг И: Истраживање о ефекту цистанцхе против рака јетре. Царциног Тератог Мутаген 30: 194‑199, 2018.
18. Мао Ј, Тиан И, Ванг Ц, Јианг К, Ли Р, Иао И, Зханг Р, Сун Д, Лианг Р, Гао З, ет ал: ЦБКС2 регулише пролиферацију и апоптозу путем фосфорилације ИАП у хепатоцелуларном карциному. Ј Рак 10: 2706‑2719, 2019.
19. Кин И, Лиу ХЈ, Ли М, Зхаи ДХ, Танг ИХ, Ианг Л, Киао КЛ, Ианг ЈХ, Зхонг ВЛ, Зханг К, ет ал: Салидрозид побољшава микроокружење хипоксичног тумора и преокреће отпорност на лекове платине путем ХИФ-1 сигнални пут. ЕБиоМедицине 38: 25-36, 2018.
20. Ливак КЈ и Сцхмиттген ТД: Анализа података о релативној експресији гена коришћењем квантитативне ПЦР у реалном времену и 2(‑Делта Делта Ц(Т)) методе. Методе 25: 402‑408, 2001.
21. Ваупел П: Физиологија микроокружења тумора и његове импликације на онкологију зрачења. Семин Радиат Онцол 14: 198‑206, 2004.
22. Цхен Ц и Лоу Т: Фактори изазвани хипоксијом у хепатоцелуларном карциному. Онцотаргет 8: 46691‑46703, 2017.
23. Сцхвабе РФ и Луедде Т: Апоптоза и некроптоза у јетри: Питање живота и смрти. Нат Рев Гастроентерол Хепатол 15: 738‑752, 2018.
24. Канда Т, Матсуока С, Иамазаки М, Схибата Т, Ниреи К, Такахасхи Х, Канеко Т, Фујисава М, Хигуцхи Т, Накамура Х, ет ал: Апоптоза и неалкохолне болести масне јетре. Ворлд Ј Гастроентерол 24: 2661-2672, 2018.
25. Питтала С, Кремлин И и Схосхан-Барматз В: Циљање рака јетре и повезаних патологија код мишева са митохондријалним пептидом заснованим на ВДАЦ1. Неопласиа 20: 594‑609, 2018.
26. Јинг ЗТ, Лиу В, Ксуе ЦР, Ву СКС, Цхен ВН, Лин КСЈ и Лин Кс: АКТ активатор СЦ79 штити хепатоците од апоптозе посредоване ТНФ-ом и ублажава д‑Гал/ЛПС-индуковану повреду јетре. Ам Ј Пхисиол Гастроинтест Физиол јетре 316: Г387‑Г396, 2019.