Широко циљана метаболомска анализа како би се открио механизам трансформације активних једињења Цистанцхе Десертицола током процеса парења и сушења
Feb 24, 2023
Цистанцхе десертицола је једна од најдрагоценијих биљака, традиционално као кинеска медицина, а однедавно се користи у фармацеутској индустрији и индустрији здраве хране. Кување на пари и сушење су два важна корака у преради Цистанцхе десертицола.
Нажалост, свеобухватно разумевање промена хемијског састава Цистанцхе десертицола током термичке обраде је ограничено. У овој студији, широко циљана метаболомичка анализа заснована на течној хроматографији-тандемској спектрометрији ултра-перформансе (УХПЛЦ-МС/МС) коришћена је да се истражи механизам трансформације активних једињења Цистанцхе десертицола током процеса парења и сушења. Укупно 776 метаболита је идентификовано у Цистанцхе десертицола током термичке обраде, међу којима је 77 метаболита било различито регулисано (п < 0.05) при чему је 39 било повишено (УР) и 38 ниже (ДР). Четрдесет седам (17 УР, 30 ДР) и 30 (22 УР, 8 ДР) диференцијалних метаболита је идентификовано током парења и сушења, респективно.
Највише варијација хемикалија примећено је током процеса парења. Анализа метаболичког пута је показала да су током парења уочени биосинтеза фенилпропаноида, флавоноида и метаболизам аланина, док су током сушења примећени метаболизам глицина, серина и треонина, метаболизам тиамина и биосинтеза незасићених масних киселина. Могући механизми хемијских промена током термичке обраде такође су дати анализом путање Кјото енциклопедије гена и генома (КЕГГ). Штавише, зацрњење изгледа Цистанцхе десертицола углавном се догодило у фази парења, а не у фази сушења, што је повезано са метаболизмом аминокиселина. Сви резултати су показали да се формирање активних једињења током обраде Цистанцхе десертицола углавном дешава у фази парења.
цлицк цистанцхе тубулоса суплементи са ефектима производа
УВОД
Цистанцхе десертицола, који припада породици Оробанцхацеае, један је од најпознатијих тоник лекова и углавном је распрострањен у тропским и суптропским регионима света, као што су Кина, Иран, Индија, Монголија и тако даље (1–3). Цистанцхе десертицола служи као један од најчешће коришћених биљних лекова за лечење недостатка бубрега, импотенције, женске неплодности, морбидне леукореје, обилне метрорагије и сенилне болести (4, 5). Савремена фармаколошка истраживања су показала да Цистанцхе десертицола има ефекте на побољшање имунитета, против умора, против старења, као и на побољшање способности учења и памћења (6). Захваљујући овим здравственим предностима, чај Цистанцхе десертицола направљен од кртола стабљике развијен је као хранљиви додатак и потрошачи га све више воле. Активни састојци Цистанцхе десертицола су одговорни за његове лековите функције (7). Неки активни састојци у Цистанцхе десертицола, као што су фенилпропаноиди (на пример, фенилетаноидни гликозиди), флавоноиди, полисахариди, олигосахариди, иридоиди и лигнани су пријављени у претходним студијама (6, 8).
Због кварљивих и сезонских карактеристика, недоступна је током целе године свежа цистанцхе десертицола, сходно томе, прерађена цистанцхе десертицола постаје главни облик потрошње. Квалитет Цистанцхе десертицола зависи од многих фактора, као што су клима, станишта, домаћини, време бербе, технологија прераде и положај биљке, међу којима је посебно важна технологија прераде (4). Кување на пари и сушење су два важна корака у преради Цистанцхе десертицола. Обично се убрани ризом Цистанцхе десертицола пари у парном котлу на 93◦Ц током 30 минута, а затим суши на 60◦Ц до садржаја влаге од 10 процената на мокрој основи (вб) (9).
Претходне студије су показале да кување на пари може подстаћи акумулацију активних састојака у Цистанцхе десертицола, као што су фенилетаноидни гликозиди, растворљиви шећери и полисахариди, праћено поцрњењем боје (9–11). Међутим, већина претходних студија се фокусирала на одређена специфична једињења, а веома ретка истраживања су о променама свих хемијских једињења и механизма конверзије метаболита током обраде. Због тога је неопходно разјаснити промене метаболита Цистанцхе десертицола у различитим фазама обраде.
Метаболомика се обично примењује на квалитативну и квантитативну анализу свих малих молекула (наиме, циљаних и нециљаних једињења) откривених у узорку (12). Анализа промена различитих хемијских компоненти током прераде хране помаже продубљивању разумевања механизма трансформације хемијских компоненти у преради хране (12). Последњих година, метаболомика је такође примењена на проучавање Цистанцхе десертицола за дискриминацију различитих делова (11) и различитих врста Цистанцхе десертицола (13).
Методе детекције метаболита у овим студијама су се углавном заснивале на циљаној и нециљаној метаболомици. Међу њима, циљана метаболомика је заснована на стандардним производима, са високом прецизношћу и поузданошћу података, међутим, ограниченим обухватом метаболита. Циљана метаболомика је важан део метаболомских истраживања, то је циљана и специфична детекција и анализа специфичних група метаболита, а не свих компоненти у узорку. Технологија нециљане метаболомике може квалитативно одредити метаболите на основу постојећих база података, са великом покривеношћу једињења, међутим, ниском прецизношћу. Кључни метаболити морају бити потврђени стандардним производима (14). Широко циљана метаболомика је нова технологија која интегрише предности нециљаних и циљаних технологија детекције метаболита како би се постигла широка покривеност, висок проток и осетљивост (15).
Сходно томе, ова технологија је широко коришћена у проучавању промена састојака у различитим материјалима током обраде, као што су активни састојци у функционалној храни различитим методама обраде (16), једињења флавоноида и фенилпропаноида у кинеском воденом кестену обрађеном различитим методама (17) , механизам жућења пиринча током процеса жућења (18) и механизам формирања карактеристичних неиспарљивих хемикалија током процеса производње оолонг чаја (19). Стога је теоретски изводљиво користити широко циљану технологију метаболита за проучавање механизма конверзије активних састојака током обраде Цистанцхе десертицола.
Стога су циљеви ове студије били (1) да се пруже корисне информације о хемијским променама у Цистанцхе десертицола током процеса парења и сушења коришћењем ултраперформансне течне хроматографије-тандем масене спектрометрије (УХПЛЦ-МС/МС) у комбинацији са широко циљаним метаболомским приступ; (2) идентификовати диференцијалне метаболите и правила њихове регулације и открити могуће путеве конверзије у Цистанцхе десертицола током обраде. Стога се очекује да ће ова студија пружити теоријску референцу за механизам формирања висококвалитетног Цистанцхе десертицола.
МАТЕРИЈАЛИ И МЕТОДЕ Материјали и хемикалије
Сировине: Свежи узорци Цистанцхе десертицола добијени су из региона Хетиан у кинеској провинцији Синђианг. Узорци су пажљиво одабрани исте величине (просечна дужина, пречник и тежина су били 11,7 ± 1,1 цм, 7.0 ± 1,1 цм и 360 ± 8,9 г, респективно). Узорци су чувани на собној температури у тамном окружењу са почетним садржајем влаге од око 78,56 % ± 3,47 % . Пре експеримената, узорци Цистанцхе десертицола су испрани водом из славине да би се уклонила прашина са површине. Вишак воде на његовој површини уклоњен је упијајућим папиром.
Хемикалије: Метанол, ацетонитрил и мравља киселина су течне хроматографије масене спектрометрије (ЛЦ-МС) и купљени су од Мерцк-а (Сигма Алдрицх, МО, САД). Остали аналитички стандарди су показали чистоћу већу од 98 процената (Сигма Алдрицх, МО, САД).
Експериментални дизајн
Претходне студије су показале да се хемијска једињења неравномерно распоређују у уздужном правцу Цистанцхе десертицола (1). Стога, да би се добио исти почетни садржај хемијских једињења у сваком узорку, у овом истраживању сва одабрана Цистанцхе десертицола је исечена на три једнака дела за свежу групу (А), парена без групе за сушење (Б) и сушена након парења групе. (Ц), респективно, уздужном сегментацијом са уздужном осом симетрије као центром (20).
За групу Б, узорци су сукцесивно парени током 8 минута према прелиминарним експериментима. Импулсна вакуумска опрема за пару (самостално развијена од стране Кинеског пољопривредног универзитета, Пекинг, Кина) коришћена је за третман паром свежих Цистанцхе десертицолас. Парени узорци су сушени у вакуумском сушачу са замрзавањем (ЛГЈ-25Ц, Си Хуан Сциентифиц Инструмент Фацтори Цо., Пекинг, Кина). Температуре грејне плоче и хладне замке биле су 30 и -60 ◦Ц, респективно. За групу Ц, узорци су сукцесивно парени коришћењем пулсне вакуумске опреме у трајању од 8 минута и сушени у сушачи са ударом топлог ваздуха (коју је самостално развио Кинески пољопривредни универзитет, Пекинг, Кина) до коначног садржаја влаге од 10 процената (вб). Брзина протока ваздуха и температура су постављени на 6 м/с и 60 ◦Ц, респективно, позивајући се на резултате истраживања Зоу ет ал. (11). Сви узорци су чувани на -20◦Ц не више од 7 дана пре даље анализе.
Одређивање боје изгледа Цистанцхе Десертицола
Боја изгледа Цистанцхе десертицола пре и после сваке термичке обраде мерена је колориметром (СМИ2000СФ, Схенгминг Ианг Цо., Пекинг, Кина), а црнило је окарактерисано вредношћу Л∗.
Припрема и екстракција узорака
Екстракција метаболита је изведена према методи коју су претходно пријавили Цхен ет ал. (21) уз неке мање модификације. Укратко, осушени узорци су уситњени помоћу млина за мешање (ММ 400, Ретсцх Цомпани, Хаан, Немачка) са зрном од цирконијума у трајању од 2 минута на 60 Хз. Затим је 50 мг праха (просејаног кроз сито од 65 месх) сваког узорка прецизно измерено, пребачено у Епендорфову епрувету и екстраховано са 1 мл мешавине метанол/вода (в:в=3:1). После вртлога од 30 с, смеша је хомогенизована два пута на 35 Хз током 4 мин, соникирана 15 мин у купатилу са ледом и водом, а затим мућкана преко ноћи на 4°Ц. После центрифугирања на 12,{16}} рпм током 15 минута на 4◦Ц, супернатант је сакупљен и филтриран кроз 0.22-µм мембрану, затим је добијени екстракт пребачен у стаклене бочице од 2 мл и чуван на -80°Ц до УХПЛЦ-МС/МС анализе.
Анализа метаболита помоћу УХПЛЦ-МС УХПЛЦ услова
УХПЛЦ одвајање је изведено коришћењем ЕКСИОНЛЦ система (Сциек Тецхнологиес, Фрамингхам, МА, САД). Аналитички услови су били следећи: колона: Ватерс АЦКУИТИ УХПЛЦ ХСС Т3 Ц18 (1.8µм, 2.1 × 100 мм); систем растварача: мобилна фаза А (0.1 проценат мравље киселине у води) и мобилна фаза Б (садржи ацетонитрил). Програм градијента: 98 процената А/2 процента Б на 0 мин, 50 процената А/50 процената Б на 10 мин, 5 процената А/95 процената Б на 11 мин, 98 процената А/2 процената Б на 13,1 мин и 98 проценат А/2 процента Б на 15 мин. Брзина протока: 0,40 мл/мин; температура колоне: 40◦Ц; запремина ињекције: 2 µл; температура аутоматског убризгавања: 4◦Ц.
ЕСИ-КТРАП-МС/МС услови
За МС је примењен троструки квадруполни (ККК)-линеарни масени спектрометар јонске замке (КТРАП, АПИ 6500 КТРАП УХПЛЦ-МС/МС) плус ККК спектрометар опремљен ЕСИ турбо-јонским спреј интерфејсом (Сциек Тецхнологиес, Фрамингхам, МА, САД). анализа. Аналитички услови су били следећи: напон распршивања јона: плус 5.500 В (режим позитивних јона)/-4.500 В (режим негативних јона), завесни гас: 35 пси, температура извора: 400◦Ц, гас извора јона 1: 60 пси, Гас извора јона 2: 60 пси, потенцијал декластерирања: ±100 В. ККК скенирања су добијена као експерименти праћења вишеструких реакција (МРМ) са колизијским гасом (азотом) подешеним на 5 пси.
Квалитативна и квантитативна анализа метаболита
Квалитативне и квантитативне анализе метаболита вршене су према методама Лиу ет ал. (18). Подаци примарне и секундарне масене спектрометрије су квалитативно анализирани на основу базе података о људском метаболому (МВДБ) (Метваре Биотецхнологи Цо., Лтд. Вухан, Кина) и јавне базе података. У међувремену, да би се осигурала тачност квалитативне анализе неких супстанци, сметње од поновљених сигнала На плус , НХ плус 4, К плус и јона и понављајућих сигнала јона фрагмената изведених из других релативно великих молекула и сигнала изотопа су уклоњени током идентификацију. Урађена је структурна анализа метаболита за јавне базе података (Масс Банк, КНАпСАцК, ХМДБ, МоТо ДБ и МЕТЛИН).
Квантификација метаболита је спроведена коришћењем МРМ режима ККК масене спектрометрије. У МРМ режиму, прекурсорски јони (матични јони) циљних супстанци и искључени јони који одговарају другим супстанцама са различитим молекулским тежинама су прво прегледани помоћу квадруполне шипке да би се иницијално елиминисале сметње. Јони прекурсора се затим пробијају кроз колизиону комору да би након јонизације формирали много фрагмената гвожђа, које је филтрирао ККК да би се одабрали појединачни фрагменти јона са жељеним карактеристикама док се елиминишу сметње од нециљних јона. Коначно, након добијања података масене спектрометрије метаболита различитих узорака, вршкови масеног спектра свих супстанци су интегрисани, а пикови масеног спектра истог метаболита у различитим узорцима су интегрисани и кориговани коришћењем Мулти Куант верзије 3.0 .2 (АБСЦИЕКС, Конкорд, Онтарио, Канада). Одговарајући релативни садржаји метаболита су представљени као хроматографски интеграли површине пика.
Обрада и анализа података
Метаболички подаци су обрађени коришћењем ортогоналне парцијалне анализе најмањих квадрата (ОПЛС-ДА) и хијерархијске кластер анализе (ХЦА). ОПЛС-ДА је коришћен за дискриминацију сваке групе; осетљивији је од других статистичких метода на варијабле са ниским корелацијама (17). ОПЛС-ДА модели су валидирани кроз анализу пермутације (200 пута). Модел се сматрао стабилним када су параметри модела (Р2 и К2) били близу 1.
Израчунате су вредности пројекције променљиве важности (ВИП) метаболита. Било који метаболит са ВИП вредностима већим од 1.0 и п-вредностима мањим од 0.05 одабрани су као биомаркери за свако упарено поређење између различитих фаза термичке обраде Цистанцхе десертицола. Скрининг различитих метаболита је визуелизован у облику графикона вулкана. Акумулација метаболита међу различитим узорцима је анализирана коришћењем Р пакета (ввв.рпројецт.орг/). Венов дијаграм је изграђен према програмском веб-базираном паметном дијаграму Р (хттпс://цлоуд.смартдрав.цом/). Комерцијалне базе података, као што је Кјото Енциклопедија гена и генома (КЕГГ) (хттпс: //ввв.кегг.јп/кегг/), Пуб Цхем (хттпс://пубцхем.нцби.нлм. них.гов/), База података о путевима малих молекула (СМПДБ) (хттпс://смпдб.ца/) и ХМДБ (хттпс://хмдб.ца/), коришћени су за анализу обогаћивања диференцијалних метаболита и проналажење метаболичких путева.
РЕЗУЛТАТИ И ДИСКУСИЈА Изглед Промене боје Цистанцхе Десертицола током термичке обраде
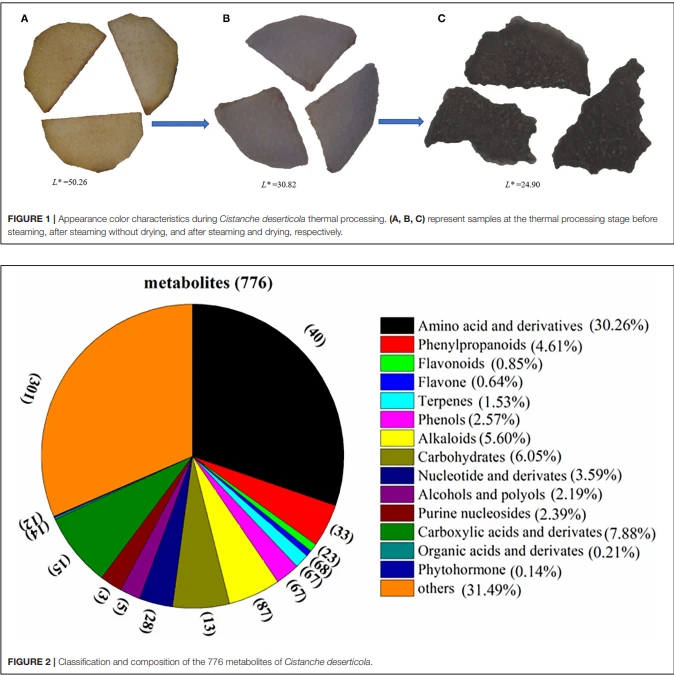
Разлика у изгледу боје Цистанцхе десертицола између свежих, парених и сушених узорака репрезентативно је приказана на слици 1. Од свежих до осушених узорака током фазе обраде, боја изгледа узорака се мењала од жуто-браон до тамно црне. , а тама у боји постајала је све очигледнија (одговарајућа вредност Л ∗ је смањена са 50,26 на 24,90). Промене изгледа Цистанцхе десертицола углавном су се дешавале у процесу парења. Маиллардова реакција, током које шећери реагују са аминокиселинама под термичким условима (22), била би у великој мери одговорна за тамно обојени изглед обрађених ризома Цистанцхе десертицола. Претходне истраживачке студије су показале да су прекурсори претворени у боје и генерисали супстанце тамне боје у Маиллард реакцији (23). Слични налази су такође примећени у претходним студијама за парење Полигонум мултифлорум (24) и ризома цистома Полигонатум (25). Мрак парених узорака је након сушења додатно продубљен. Ова појава је вероватно настала услед појаве смањења концентрације пигмента током процеса сушења.
Преглед метаболита у сировим и термички обрађеним узорцима Цистанцхе Десертицола
Укупни јонски хроматограм (ТИЦ) узорка за контролу квалитета (КК) (мешавина свих испитиваних узорака) и дијаграм детекције са више пикова хемикалија у МРМ режиму истог узорка илустровани су на додатној слици 1. Приказани су различити обојени врхови различите компоненте у узорку. Као што је приказано на слици 2, укупна количина од 776 метаболита је идентификована у тренутној студији (допунска табела 1) у свежим узорцима Цистанцхе десертицола, који су подељени у 15 класа, укључујући 40 аминокиселина и деривата, 33 фенилпропаноида, 23 флавоноида, 68 флавона, 67 терпена, 67 фенола, 87 алкалоида, 13 угљених хидрата, 28 нуклеотида и деривата, 5 алкохола и полиола, 3 пуринска нуклеозида, 15
карбоксилне киселине и деривати, 14 органских киселина и деривата, 12 фитохормона и 28 других хемикалија. Међу њима, највећу групу чиниле су аминокиселине и деривати, чији је релативни садржај чинио 30,26 одсто укупног састава метаболита. Поред тога, 10 врста фенилетаноидних гликозида, као што су ехинакозид и вербаскозид, откривено је и класификовано у групу фенилпропаноида.
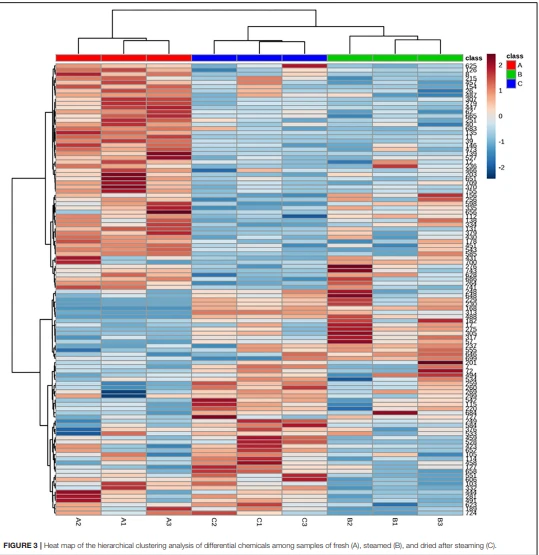
ХЦА је анализирао образац акумулације метаболита међу различитим третманским групама. Као што је приказано на слици 3, 107 идентификованих метаболита Цистанцхе десертицола груписано је у топлотне мапе засноване на еуклидској аритметици удаљености. Метаболити идентификовани у различитим фазама термичке обраде сакупљени су у три кластера према дендрограму. Светлија боја указује на већи садржај одређеног метаболита у одговарајућем узорку. Топлотна мапа ХЦА показала је веће разлике у обиљу између свежих и парених узорака од оних између парених и сушених узорака, што указује да метаболити у Цистанцхе десертицола могу имати различите трансформације током фазе парења и сушења, као и врсте и количине метаболита укључених у процес парења су више од оних у процесу сушења.
Диференцијална анализа метаболита Цистанцхе Десертицола у различитим фазама термичке обраде
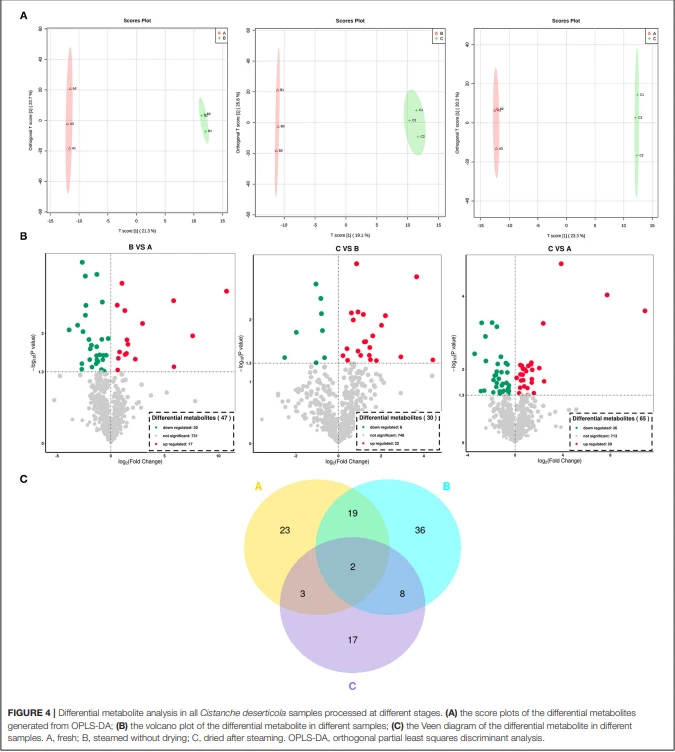
За боље разумевање утицаја сваке обраде на метаболите Цистанцхе десертицолас, ОПЛС-ДА резултати расипања група за поређење у пару приказани су на слици 4А, показујући да су се свеже, парене и осушене након парења Цистанцхе десертицолас значајно разликовале. Штавише, Р2И и К2 (као што је приказано на додатној слици 2) са високим тестним вредностима показали су да је овај модел био веома поуздан без прекомерног прилагођавања.
За скрининг нивоа експресије метаболита између свежег, пареног и осушеног након парења Цистанцхе десертицола, анализа вулканског дијаграма је даље примењена међу свих 776 метаболита идентификованих у складу са променом преклопа, у комбинацији са ВИП вредностима да би се скринирали различито изражени метаболити. Значајни диференцијални метаболити су одабрани према критеријуму да фолд мења резултат већи или једнак 2 или мањи од или једнак 0.5 са ВИП већим или једнаким 1. Резултати скрининга су илустровани у Слика 4Б. На вулканској мапи, свака тачка представља метаболит, а боја расутих тачака представља коначни резултат скрининга. Црвена представља метаболите који су значајно повећани (УР), зелена представља оне који су значајно смањени (ДР), а сива представља оне безначајно различите. Као што је приказано на слици 4Б, 47 метаболита у групи свеже у односу на парену (17 УР и 30 ДР), 30 метаболита у групи која се кува на пари у односу на сушену (22 УР и 8 ДР) и 65 метаболита у групи свеже у односу на сушену (29 УР и 36 ДР) одабрани су да се значајно разликују. Број значајно различитих метаболита у групи свежих у односу на парену био је већи од оних у групи куваних на пари у односу на сушене, што указује да је утицај на метаболите у процесу парења већи од утицаја процеса сушења.
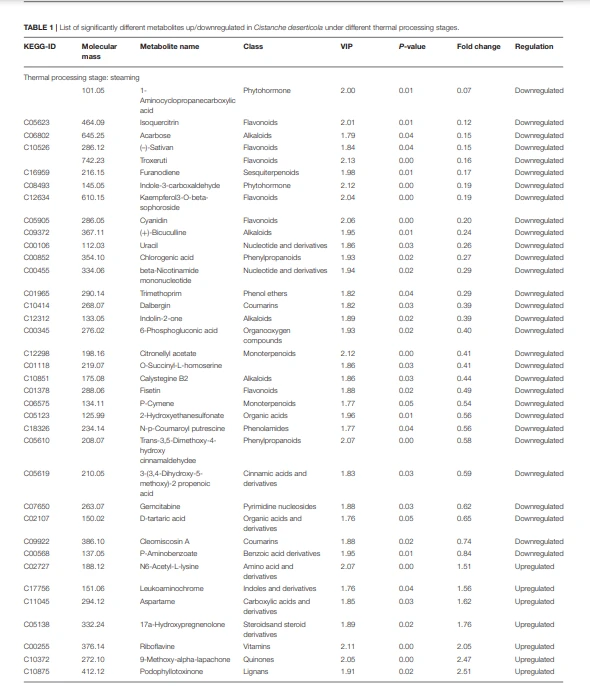
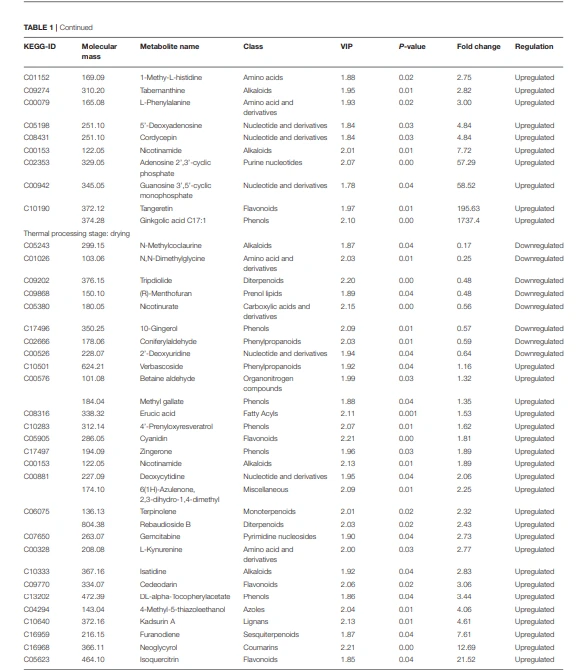
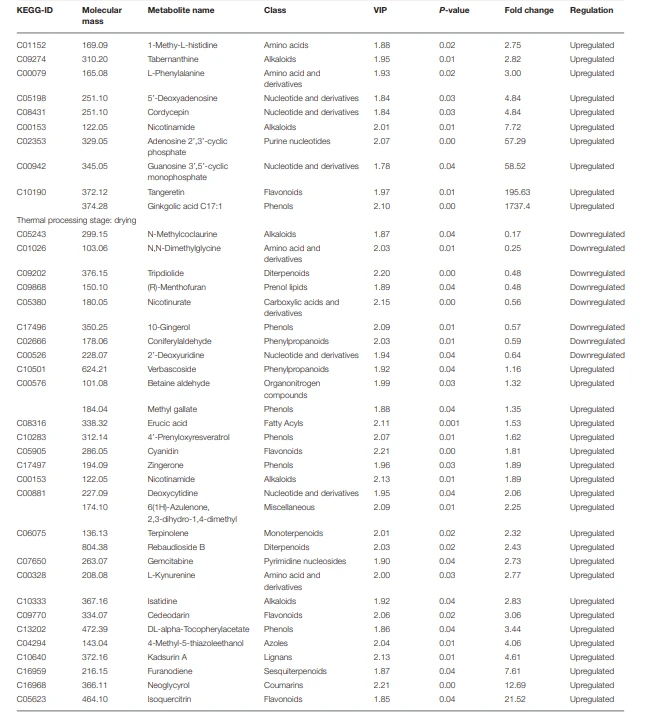
Диференцијални метаболити произведени током термичке обраде Цистанцхе десертицола су даље класификовани и упоређени. Ови различито изражени метаболити су класификовани у 21 класу, углавном аминокиселине и њихови деривати, флавоноиди и њихови деривати, фенилпропаноиди, алкалоиди, терпени, феноли и нуклеотиди и њихови деривати (Табела 1). У групи свеже у односу на пару, може се наћи да флавоноиди (као што су изокверцитрин, троксерутин, цијанидин и фисетин), фенилпропаноиди (као што је хлорогена киселина и 3-(3,4-дихидрокси{ {5}}метокси)-2-пропенска киселина), и нуклеотид и њихови деривати (урацил и бетаникотинамид мононуклеотид) су значајно ДР, док су амино киселине и њихови деривати (као што је Н6-ацетил-Л-лизин , 1- Метхи-Л-хистидин и Л-Пхенилаланин) су значајно УР.
Међутим, у групи која је кувана на пари у односу на сушену, трендови експресије ових типова диференцијалних метаболита били су супротни. Неки амино и њихови деривати (као што је Н,Н-диметилглицин), нуклеотиди и њихови деривати (као што су 2′-деоксиуридин; деоксиуридин) су били значајно ДР, док је већина фенола (као што су метил галат и 4′-пренилоксиресвератрол), флавоноиди (као што су изокверцитрин и цијанидин), фенилпропаноиди (вербаскозид) и терпени (као што су терпинолен и фуранон) били су значајно УР. Ови резултати су показали да је хемијски састав Цистанцхе десертицола претрпео конверзију током термичке обраде, што се углавном огледа у конверзији флавоноида, фенилпропаноида и аминокиселина, а механизам конверзије ових компоненти је различит у различитим фазама обраде.
Раније је утврђено да употреба високе температуре током процеса парења и сушења подстиче хидролизу, редокс, изомеризацију, супституцију и друге термофизичке и хемијске реакције метаболита (26). У овој студији је откривено да су метаболити, као што су флавоноиди и фенилпропаноиди, значајно акумулирани у пареној Цистанцхе десертицола у поређењу са одговарајућим свежим, што указује да би неке кључне физиолошке и метаболичке активности које доводе до синтезе флавоноида и фенилпропаноида могле бити активира се под високом температуром и влагом. Овај резултат може бити подржан и извештајем Пенг ет ал. (10) који су открили да се садржај ПхГ (који припадају фенилпропаноидима) повећава након парења. Међутим, акумулација ових компоненти у осушеном узорку након парења показала је значајно смањење, што се може приписати термичкој деградацији ових компоненти осетљивих на топлоту током дуготрајног процеса сушења. Претходне студије су показале да се флавоноидни гликозиди могу разложити на шећерна тела и флавоноидне агликоне у термичким условима, а на губитак флавоноида током процеса сушења синтетички утичу температура и време сушења (26, 27). Повећана регулација аминокиселина и њихових деривата (Н6-Ацетил-Л-лизин, 1-Метхи-Л-хистидин и фенилаланин) се приписује разградњи протеина која подстиче високу температуру током обраде на пари. Поред тога, такође је примећено да су неке друге аминокиселине и њихови деривати Н, Н-диметилглицина, Л-кинуренина, глицина, серина и треонина ДР. Смањење садржаја ових аминокиселина може бити повезано са термално индукованом Маиллардовом реакцијом током које редукциони шећери реагују са аминокиселинама да би генерисали 5-ХМФ, доприносећи стварању црног изгледа у Цистанцхе десертицола (22) .
Резултати промене боје изгледа секције цистанцхе десертицола током термичке обраде додатно су потврдили ову хипотезу. Стога је поцрњење Цистанцхе десертицола током парења вероватно било повезано са метаболизмом аминокиселина. Венов дијаграм је коришћен за разликовање уобичајених и ексклузивних метаболита Цистанцхе десертицола током различитих фаза термичке обраде. Као што је приказано на слици 4Ц, и уобичајени и јединствени метаболити постоје између различитих група за поређење. Двадесет и један заједнички метаболит је примећен између свеже и парене групе, док је само 5 и 10 метаболита пронађено заједнички између свеже и сушене групе, и групе парене и сушене, респективно. Дакле, укупно 23 и 17 ексклузивних метаболита (п < 0,05) примећено је у Цистанцхе десертицола током фазе термичке обраде паре и сушења, респективно. Овај резултат је даље потврдио да је парење посебно критично за конверзију метаболита током обраде Цистанцхе десертицола.
Анализа обогаћивања и анализа утицаја диференцијалних метаболита на КЕГГ пут
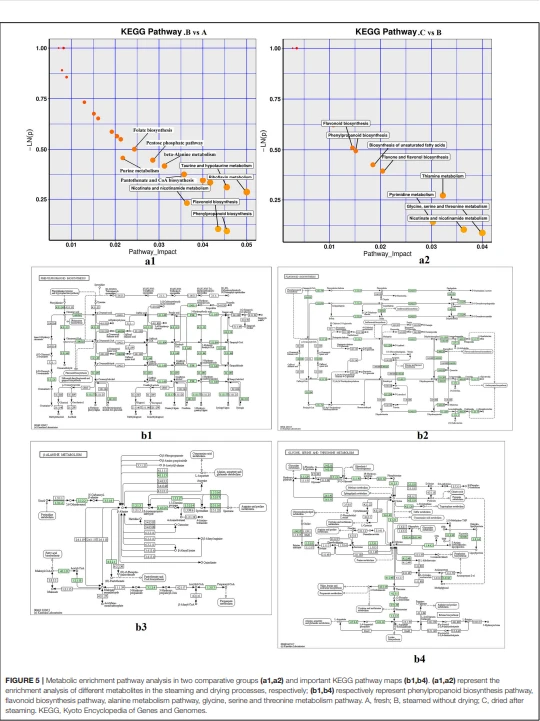
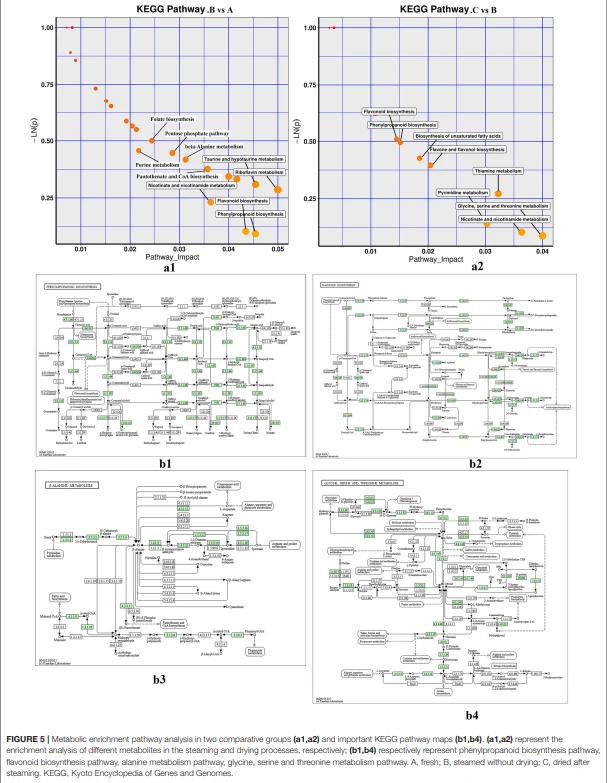
Диференцијални метаболити (п < 0.05) у свежим и обрађеним узорцима мапирани су у онлајн базе података КЕГГ, ХМДБ и ПубЦхем, које садрже знање о молекуларној интеракцији, реакцији и мрежама веза, као и резултате обогаћивања а детаљни метаболички путеви су приказани у додатној табели 2 и слици 5. Као што је приказано на сликама 5а1 и а2, утицај на пут је открио обогаћивање биосинтезе фенилпропаноида, биосинтезе флавоноида, метаболизма аланина, метаболизма рибофлавина, метаболизма таурина и хипотаурина и никотината метаболизам током парења Цистанцхе десертицола. Док су, током процеса сушења након парења, метаболички путеви диференцијалних метаболита углавном садржавали метаболизам глицина, серина и треонина, метаболизам тиамина, метаболизам пиримидина и биосинтезу незасићених масних киселина.
Штавише, неки метаболички путеви између ова два поређења у пару су се преклапали, као што су метаболизам никотината и никотинамида, биосинтеза фенилпропаноида и биосинтеза флавоноида, али су њихови нивои обогаћивања били веома различити у два поређења у пару. Ови резултати сугеришу да су путеви конверзије метаболита између процеса парења и сушења Цистанцхе десертицола различити, а разлике у метаболичким путевима могу објаснити разлике у присуству различито искључивих метаболита током термичке обраде. Ове биохемијске промене могу се користити за разумевање утицаја фаза термичке обраде на састав Цистанцхе десертицола.
четири метаболичка пута (биосинтеза фенилпропаноида, биосинтеза флавоноида, метаболизам аланина и метаболизам глицина, серина и треонина) изабрана су као кључни метаболити за карактеризацију конверзије главних активних компоненти Цистанцхе десертицола током термичке обраде (Слике 5б1,б2). Садашња студија је показала да су се фенилпропаноиди и флавоноиди акумулирали, али су аминокиселине разграђене у пари Цистанцхе десертицола у поређењу са свежим и осушеним узорцима. Пут биосинтезе фенилпропаноида је узводно од пута биосинтезе флавоноида. Сличне закључке објавили су Лиу ет ал. (18) који је известио да се ниво акумулације фенилпропаноида у процесу жућења пиринча значајно повећао у поређењу са нормалним пиринчем. Фенилпропаноиди су изведени из циметне киселине, а њихов прекурсор је фенилаланин, који се може синтетизовати активирањем активности фенилаланин амонијак-лијазе (ПАЛ) при загревању (28).
Претходне студије су објавиле да фенилпропаноидни пут води до биосинтезе кумарина, флавона, изофлавона и флавонола, који су важно оружје за одбрану биљака (29), и да се спречи ћелијска смрт узрокована јаким топлотним стресом у процесу парења, фенилпропаноид пут може бити побољшан услед биолошког стреса изазваног високом температуром (30, 31). Флавоноиди су главни секундарни метаболити добијени од фенилпропаноида (32), а њихово накупљање може заштитити биљке од оксидативног оштећења слободних радикала (33). У поређењу са свежом и сушеном цистанцхе десертицола, већа биосинтеза флавоноида у пареној цистанцхе десертицола може бити повезана са појачаним топлотним стресом током процеса парења који штити реактивне врсте кисеоника (РОС) (34, 35). Као што је приказано на сликама 5б3 и б4, метаболизам аминокиселина играо је важну улогу у термичкој обради Цистанцхе десертицола. Промене садржаја аланина, глицина, серина и треонина након парења које се налазе у лековитом биљу коришћене су да укажу на појаву Маиллардове реакције (36).
Ипак, због компликованог процеса парења Цистанцхе десертицола, треба даље истражити свеобухватну процену парења Цистанцхе десертицола, као што су црнило по изгледу, активна једињења и метаболички биомаркери.
ЗАКЉУЧЦИ
У овој студији, коришћен је широко циљани метаболомички приступ заснован на УХПЛЦ-МС/МС за проучавање механизма формирања активних једињења у различитим фазама термичке обраде Цистанцхе десертицола. Садашњи резултати су открили да је биосинтеза неких кључних метаболита, као што су фенилпропаноиди и флавоноиди, значајно побољшана током процеса парења. Ниво експресије аминокиселина у пари Цистанцхе десертицола је повећан, што указује на трансформацију између примарних и секундарних метаболита. Поред тога, зацрњење изгледа Цистанцхе десертицола се углавном дешавало у фази парења, а не у фази сушења, ова карактеристика је повезана са путем метаболизма аминокиселина. Међутим, нивои горе наведених метаболита су се значајно смањили током процеса сушења, што сугерише да се формирање активних једињења углавном дешава у фази парења током термичке обраде Цистанцхе десертицола. Колико нам је познато, ово је први пут да је широко циљана метаболомска метода коришћена за откривање механизма промена активног једињења током термичке обраде и њиховог кључног доприноса поцрњењу Цистанцхе десертицола. Међутим, потребно је даље истраживање ради бољег разумевања односа између биосинтезе активних једињења и поцрњења изгледа током термичке обраде.
Анализа обогаћивања и анализа утицаја диференцијалних метаболита на КЕГГ пут
Диференцијални метаболити (п < 0.05) у свежим и обрађеним узорцима мапирани су у онлајн базе података КЕГГ, ХМДБ и ПубЦхем, које садрже знање о молекуларној интеракцији, реакцији и мрежама веза, као и резултате обогаћивања а детаљни метаболички путеви су приказани у додатној табели 2 и слици 5. Као што је приказано на сликама 5а1 и а2, утицај на пут је открио обогаћивање биосинтезе фенилпропаноида, биосинтезе флавоноида, метаболизма аланина, метаболизма рибофлавина, метаболизма таурина и хипотаурина и никотината метаболизам током парења Цистанцхе десертицола. Док су, током процеса сушења након парења, метаболички путеви диференцијалних метаболита углавном садржавали метаболизам глицина, серина и треонина, метаболизам тиамина, метаболизам пиримидина и биосинтезу незасићених масних киселина. Штавише, неки метаболички путеви између ова два поређења у пару су се преклапали, као што су метаболизам никотината и никотинамида, биосинтеза фенилпропаноида и биосинтеза флавоноида, али су њихови нивои обогаћивања били веома различити у два поређења у пару. Ови резултати сугеришу да су путеви конверзије метаболита између процеса парења и сушења Цистанцхе десертицола различити, а разлике у метаболичким путевима могу објаснити разлике у присуству различито искључивих метаболита током термичке обраде. Ове биохемијске промене могу се користити за разумевање утицаја фаза термичке обраде на састав Цистанцхе десертицола.
На основу КЕГГ анотације и анализе обогаћивања, четири метаболичка пута (биосинтеза фенилпропаноида, биосинтеза флавоноида, метаболизам аланина и метаболизам глицина, серина и треонина) су изабрани као кључни метаболити за карактеризацију конверзије главних активних компоненти током термичког Цистанцхе десертицола. обрада (слике 5б1,б2). Садашња студија је показала да су се фенилпропаноиди и флавоноиди акумулирали, али су аминокиселине разграђене у пари Цистанцхе десертицола у поређењу са свежим и осушеним узорцима. Пут биосинтезе фенилпропаноида је узводно од пута биосинтезе флавоноида. Сличне закључке објавили су Лиу ет ал. (18) који је известио да се ниво акумулације фенилпропаноида у процесу жућења пиринча значајно повећао у поређењу са нормалним пиринчем. Фенилпропаноиди су изведени из циметне киселине, а њихов прекурсор је фенилаланин, који се може синтетизовати активирањем активности фенилаланин амонијак-лијазе (ПАЛ) при загревању (28).
Претходне студије су објавиле да фенилпропаноидни пут води до биосинтезе кумарина, флавона, изофлавона и флавонола, који су важно оружје за одбрану биљака (29), и да се спречи ћелијска смрт узрокована јаким топлотним стресом у процесу парења, фенилпропаноид пут може бити побољшан услед биолошког стреса изазваног високом температуром (30, 31). Флавоноиди су главни секундарни метаболити добијени од фенилпропаноида (32), а њихово накупљање може заштитити биљке од оксидативног оштећења слободних радикала (33).
У поређењу са свежом и сушеном цистанцхе десертицола, већа биосинтеза флавоноида у пареној цистанцхе десертицола може бити повезана са појачаним топлотним стресом током процеса парења који штити реактивне врсте кисеоника (РОС) (34, 35). Као што је приказано на сликама 5б3 и б4, метаболизам аминокиселина играо је важну улогу у термичкој обради Цистанцхе десертицола. Промене садржаја аланина, глицина, серина и треонина након парења које се налазе у лековитом биљу коришћене су да укажу на појаву Маиллардове реакције (36). Ипак, због компликованог процеса парења Цистанцхе десертицола, треба даље истражити свеобухватну процену парења Цистанцхе десертицола, као што су црнило по изгледу, активна једињења и метаболички биомаркери.
ЗАКЉУЧЦИ
У овој студији, коришћен је широко циљани метаболомички приступ заснован на УХПЛЦ-МС/МС за проучавање механизма формирања активних једињења у различитим фазама термичке обраде Цистанцхе десертицола. Садашњи резултати су открили да је биосинтеза неких кључних метаболита, као што су фенилпропаноиди и флавоноиди, значајно побољшана током процеса парења. Ниво експресије аминокиселина у пари Цистанцхе десертицола је повећан, што указује на трансформацију између примарних и секундарних метаболита. Поред тога, зацрњење изгледа Цистанцхе десертицола се углавном дешавало у фази парења, а не у фази сушења, ова карактеристика је повезана са путем метаболизма аминокиселина. Међутим, нивои горе наведених метаболита су се значајно смањили током процеса сушења, што сугерише да се формирање активних једињења углавном дешава у фази парења током термичке обраде Цистанцхе десертицола. Колико нам је познато, ово је први пут да је широко циљана метаболомска метода коришћена за откривање механизма промена активног једињења током термичке обраде и њиховог кључног доприноса поцрњењу Цистанцхе десертицола. Међутим, потребно је даље истраживање ради бољег разумевања односа између биосинтезе активних једињења и поцрњења изгледа током термичке обраде.
ИЗЈАВА О ДОСТУПНОСТИ ПОДАТАКА
Оригинални прилози представљени у студији укључени су у чланак/допунски материјал, даља питања се могу упутити одговарајућим ауторима.
ПРИЛОЗИ АУТОРА
ЗА је спровео експериментални дизајн, извео експерименте, генерисао податке и написао овај рукопис. ИЗ је извршио анализу метаболизма. КСЛ је пружио статистичку анализу. ВС је спровео обраду података и истрагу. Прибављање средстава, општи оквир и писање-рецензија су завршени од стране ИЛ. Сви аутори су дали допринос чланку и одобрили достављену верзију.
ФИНАНСИРАЊЕ
Овај рад је финансијски подржало Одељење за науку и технологију провинције Гуангдонг (бр. 2018Б020241003).
ДОДАТНИ МАТЕРИЈАЛ
Додатни материјал за овај чланак може се наћи на мрежи на: хттпс://ввв.фронтиерсин.орг/артицлес/10.3389/фнут.2021. 742511/фулл#супплементари-материјал

РЕФЕРЕНЦЕ
1. Ванг Кс, Ванг Ј, Гуан Х, Ксу Р, Луо Кс, Су М, ет ал. Поређење хемијских профила и антиоксидативних активности различитих делова култивисаног Цистанцхе десертицола коришћењем течне хроматографије ултра-перформансе-квадруполне масене спектрометрије времена лета и теста на бази 1,1-дифенил-2-пикрилхидразила. Молецулес. (2017) 22:2011. дои: 10,3390/молецулес22112011
2. Фу З, Фан Кс, Ванг Кс, Гао Кс. Цистанцхес Херба: преглед његове хемије, фармакологије и фармакокинетике. Ј Етхнопхармацол. (2018) 219: 233–47. дои: 10.1016/ј.јеп.2017.10.015
3. Пивоварцзик Р, Царлон Л, Касинска Ј, Тофил С, Фурма ´ нцзик П. ´ Микроморфолошка интраспецифична диференцијација водича за нектар и платформа за слетање за опрашиваче у иберијској паразитској биљци Цистанцхе пхелипӕа (Оробанцхацеае). Бот Летт. (2016) 163:47–55. дои: 10.1080/12538078.2015.1124287
4. Јианг И, Ту П. Анализа хемијских састојака у врстама Цистанцхе. Ј Цхроматогр а. (2009) 1216:1970–9. дои: 10.1016/ј.цхрома.2008. 07.031
5. Ли З, Лин Х, Гу Л, Гао Ј, Тзенг Ц. Херба Цистанцхе (Роу Цонг-Ронг): Један од најбољих фармацеутских дарова традиционалне кинеске медицине. Фронт Пхармацол. (2016) 7:41. дои: 10.3389/фпхар.2016.00041
6. Сонг И, Зенг К, Јианг И, Ту П. Цистанцхес Херба, од угрожене врсте до великог бренда кинеске медицине. Мед Рес Рев. (2021) 5:1–39. дои: 10.1002/мед.21768
7. Ксионг К, Кадота С, Тани Т, Намба Т. Антиоксидативни ефекти фенилетаноида из Цистанцхе десертицола. Биол Пхармац Булл. (1996) 19:1580–5. дои: 10.1248/боб.19.1580
8. Ванг Л, Динг Х, Иу Х, Хан Л, Лаи К, Зханг Л, ет ал. Цистанцхес херба: хемијски састојци и фармаколошки ефекти. Цхин Хербал Мед. (2015) 7:135–42. дои: 10.1016/С1674-6384(15)60017-Кс
9. Пенг Ф, Ксу Р, Ванг Кс, Ксу Ц, Лиу Т, Цхен Ј. Ефекат процеса парења на квалитет Цистанцхе десертицола након жетве за медицинску употребу током сушења на сунцу. Биол Пхарм Булл. (2016) 39: 2066–70. дои: 10.1248/боб.б16- 00250
10. Пенг Ф, Цхен Ј, Ванг Кс, Ксу Ц, Лиу Т, Ксу Р. Промене у нивоима фенилетаноидних гликозида, антиоксидативне активности и других особина квалитета у резовима Цистанцхе десертицола обрадом паром. Цхем Пхарм Булл. (2016) 64: 1024–30. дои: 10.1248/ЦПБ.ц16-00033
11. Зоу П, Сонг И, Леи В, Ли Ј, Ту П, Јианг И. Примена метаболомике засноване на 1 Х НМР за разликовање различитих делова и развој новог процеса обраде за Цистанцхе десертицола. Ацта Пхарм Син Б. (2017) 7:647–56. дои: 10.1016/ј.апсб.2017.07.003
12. Зхенг Ј, Ву З, Ианг Н, Зхоу К, Ху В, Оу С, ет ал. Широко циљана УХПЛЦ-МС/МС метаболомска анализа хемијских варијација у пециву пуњеним боровницама током обраде. Границе у исхрани. (2020) 7:569172. дои: 10.3389/фнут.2020.569172
13. Лиу В, Сонг К, Цао И, Ксие Н, Ли З, Јианг И, ет ал. Од циљане метаболомске стратегије засноване на 1Х НМР-у до циљане метаболомске стратегије засноване на ЛЦ-МС за дубинска поређења камилице између четири врсте Цистанцхе. Ј Пхармацеут Биомед. (2019) 162:16–27. дои: 10.1016/ј.јпба.2018.09.013
14. Ванг Х, Хуа Ј, Иу К, Ли Ј, Ванг Ј, Денг И, ет ал. Широко циљана метаболомска анализа открива динамичке промене у неиспарљивим и испарљивим метаболитима током обраде зеленог чаја. Фоод Цхем. (2021) 363:130131. дои: 10.1016/ј.фоодцхем.2021.130131
15. Коистинен ВМ, Да Силва АБ, Абранко Л, Лов Д, Виллалба РГ, Барберан ФТ, ет ал. Међулабораторијски тест покривености биоактивних једињења биљне хране и њихових метаболита нециљаном метаболомиком заснованом на масеној спектрометрији. Метаболити. (2018) 8:46. дои: 10.3390/метабо8030046
16. Сантин М, Луцини Л, Цастагна А, Цхиоделли Г, Хаусер М, Раниери А. УВ-Б зрачење након бербе модулира профил метаболита у плодовима брескве. Постхарвест Биол Тец. (2018) 139:127– 34. дои: 10.1016/ј.постхарвбио.2018.02.001
17. Ние Х, Цхен Х, Ли Г, Су К, Сонг М, Дуан З, ет ал. Поређење флавоноида и фенилпропаноидних једињења у кинеском воденом кестену обрађеном различитим методама. Фоод Цхем. (2021) 335:127662. дои: 10.1016/ј.фоодцхем.2020.127662
18. Лиу И, Лиу Ј, Ванг Р, Сун Х, Ли М, Страппе П, ет ал. Анализа секундарних метаболита индукованих процесом жућења за разумевање механизма жућења пиринча. Фоод Цхем. (2021) 342:128204. дои: 10.1016/ј.фоодцхем.2020.128204
19. Ву Л, Хуанг Кс, Лиу С, Лиу Ј, Гуо И, Сун И, ет ал. Разумевање механизма формирања карактеристичних неиспарљивих хемикалија оолонг чаја током производних процеса коришћењем интегрисане широко циљане анализе метаболома и ДИА протеома. Фоод Цхем. (2020) 310:125941. дои: 10.1016/ј.фоодцхем.2019.125941
20. Ксие И, Ли Кс, Зханг И, Зхенг З, Хуанг Л, Лиу Д, ет ал. Ефекти парења са високом влажношћу топлог ваздуха на Гастродиа елата: степен парења, губитак тежине, текстура, кинетика сушења, микроструктура и активне компоненте. Фоод Биопрод Процесс. (2021) 127:255–65. дои: 10.1016/ј.фбп.2021.03.005
21. Цхен В, Гонг Л, Гуо З, Ванг В, Зханг Х, Лиу Кс, ет ал. Нова интегрисана метода за масовну детекцију, идентификацију и квантификацију широко циљаних метаболита: примена у проучавању метаболомике пиринча. Мол Плант. (2013) 6:1769–80. дои: 10.1093/мп/сст080
22. Арена С, Рензоне ГД, Амбросио Ц, Салзано АМ, Сцалони А. Млечни производи и Маиллардова реакција: обећавајућа будућност за опсежну карактеризацију хране путем интегрисаних студија протеомике. Фоод Цхем. (2017) 219: 477–89. дои: 10.1016/ј.фоодцхем.2016.09.165
23. Риззи Г П. Хемијска структура обојених производа Маиллардове реакције. Фоод Рев Инт. (1997) 13:1–28. дои: 10.1080/87559129709541096
24. Лиу З, Цхао З, Лиу И, Сонг З, Лу А. Маиллардова реакција укључена у процес парења корена Полигонум мултифлорум. Планта Мед. (2009) 75:84–8. дои: 10,1055/с-0028-1088349
25. Јин Ј, Лао Ј, Зхоу Р, Хе В, Кин И, Зхонг Ц, ет ал. Симултана идентификација и динамичка анализа сахарида током обраде паром ризома цистома Полигонатум помоћу ХПЛЦ–КТОФ–МС/МС. Молецулес. (2018) 23:2855. дои: 10,3390/молецулес23112855
26. Ван КСЦ. Биохемија чаја (треће издање). Пекинг: Кинеска пољопривредна издавачка кућа (2003). стр. 41–5.
27. Ксу И, Ксиао И, Лагника Ц, Ли Д, Лиу Ц, Јианг Н, ет ал. Упоредна процена нутритивних својстава, антиоксидативног капацитета и физичких карактеристика купуса (Брассица олерацеа вар. Цапитате вар Л) подвргнутог различитим методама сушења. Фоод Цхем. (2020) 309:124935. дои: 10.1016/ј.фоодцхем.2019.06.002
28. Дикон РА, Паива Н Л. Метаболизам фенилпропаноида изазван стресом. Биљних ћелија. (1995) 7:1085–97. дои: 10.1105/тпц.7.7.1085
29. Гупта Р, Мин ЦВ, Ким СВ, Ванг И, Агравал ГК, Раквал Р, ет ал. Упоредно истраживање омотача семена смеђе у односу на жуто обојено семе соје коришћењем интегрисаног протеомског и метаболомског приступа. Протеомика. (2015) 15:1706–16. дои: 10.1002/пмиц.201400453
30. Цоммиссо М, Тоффали К, Страссер П, Стоццхеро М, Цеолдо С, Балдан Б, ет ал. Утицај фенилпропаноидних једињења на толеранцију топлотног стреса у ћелијским културама шаргарепе. Фронт Плант Сци. (2016) 7:1439. дои: 10.3389/фплс.2016.01439
31. Вахид А, Гелани С, Асхраф М, Фоолад М. Топлотна толеранција у биљкама: преглед. Енвирон Екп Бот. (2007) 61:199–223. дои: 10.1016/ј.енвекпбот.2007.05.011
32. Ву Кс, Иуан Ј, Луо А, Цхен И, Фан И. Стрес од суше и поновно заливање повећавају секундарне метаболите и активност ензима у дендробиум монилиформу. Инд Цроп Прод. (2016) 94:385–93. дои: 10.1016/ј.индцроп.2016.08.041
33. Ванг И, Рен В, Ли И, Ксу И, Тенг И, Цхристие П, ет ал. Нециљана метаболомска анализа за откривање утицаја стреса ди (2-етилхексил) фталата на ексудате корена луцерке (Медицаго сатива). Сци Тотал Енвирон. (2019) 646:212–9. дои: 10.1016/ј.сцитотенв.2018.07.247
34. Јиа Кс, Сун Ц, Ли Г, Ли Г, Цхен Г. Ефекти прогресивног стреса од суше на физиологију, антиоксидативне ензиме и секундарне метаболите Радик Астрагали. Ацта Пхисиол Плант. (2015), 37:262. дои: 10.1007/с11738-015- 2015-4
35. Паупиере МЈ, Муллер Ф, Ли Х, Риеу И, Тикунов ИМ, Виссер Р ГФ, ет ал. Нециљана метаболомска анализа развоја полена парадајза и одговора на топлотни стрес. Плант Репрод. (2017) 30:81–94. дои: 10.1007/с00497-017-0301-6
36. Цхен Ј, Хо Ц. Поређење производње испарљивих материја у моделским системима серин/треонин/глутамин-рибоза/глукоза/фруктоза. Ј Агр Фоод Цхем. (1999) 47:643–7. дои: 10.1021/јф980771а
Сукоб интереса:
Аутори изјављују да је истраживање спроведено у одсуству било каквих комерцијалних или финансијских односа који би се могли протумачити као потенцијални сукоб интереса.
Напомена издавача:
Све тврдње изражене у овом чланку искључиво су тврдње аутора и не представљају нужно оне њихових придружених организација или издавача, уредника и рецензената. Издавач не гарантује нити подржава било који производ који се може оценити у овом чланку или тврдње које може да направи његов произвођач.
Ауторска права © 2021 Аи, Зханг, Ли, Сун и Лиу. Ово је чланак отвореног приступа који се дистрибуира под условима лиценце Цреативе Цоммонс Аттрибутион Лиценсе (ЦЦ БИ). Употреба, дистрибуција или репродукција на другим форумима је дозвољена, под условом да су оригинални аутор(и) и власник(и) ауторских права наведени и да је оригинална публикација у овом часопису цитирана, према прихваћеној академској пракси. Није дозвољена никаква употреба, дистрибуција или репродукција која није у складу са овим условима.
For more information:1950477648nn@gamil.com