Скела против старења - Клотхо геном активирана подстиче помлађујући одговор на зарастање рана у матичним ћелијама које потичу од људске масноће
Apr 12, 2023
3. Дискусија
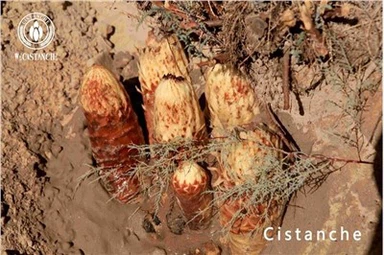
Ова студија је имала за циљ да истражи функционални утицај анти-агинга - Скела активирана Клотхо геном на људским АДСЦ за побољшано зарастање рана. Све у свему, открили смо да скела активирана генима нуди контролисану активацију регенеративних способности АДСЦ-а као што је приказано на слици5. Конкретно, скела активирана генима је привремено побољшала стабљику АДСЦ-а кроз активацију фактора транскрипције Оцт-4. Скела активирана генима такође је промовисала рану активацију антифибротичног гена ТГФ- 3, кључни фактор за контролисано зарастање са смањеним ожиљцима. Штавише, активирани АДСЦ-и су временски контролисали ендотелну ангиогенезу и подржавали зарастање дермалних фибробласта кроз паракрину сигнализацију. У правцу сазревања, АДСЦ-и су такође контролисали активацију профиброзног одговора у дермалним фибробластима. У међувремену, АДСЦ на скели активираној геном ефикасно су регенерисали дермалну базалну мембрану повећавајући таложење ламинина и колагена ИВ. Овај одговор је даље повезан са смањењем ожиљака - Експресија СМА протеина и побољшана квалитативно таложење матрикса еластина. Наша студија је колективно утврдила да је -Клотхо ген-активиранЦистанцхепоседује огроман потенцијал зазарастање ранаи могаонапредна терапија заснована на матичним ћелијама за подмлађивање и лечење.

Слика 5. Шема функционалног утицаја скеле активиране Б-Клотхо геном на хумане АДСЦ за примену за зарастање рана. Кључни налази ове студије су (1) пролазно побољшање плурипотенције матичних ћелија и антифиброзног одговора, (2) побољшана паракрина контрола ангиогенезе и профибротично ремоделирање колагена у дермалним фибробластима и на крају, (3) повећано сазревање базална мембрана са контролом експресије протеина повезаних са ожиљком Испрекидане линије за еластински матрикс имплицирају побољшано квалитативно таложење.

Кликните овде да бисте сазнали како ЦистанцхеЕфекти зарастања рана
У стратегијама зарастања рана, генска терапија заснована на плазмиду се примењује да би се привремено побољшали ћелијски одговори док се поправка ране не заврши [37]. Наш генски активиран скела такође показује да је терапеутски -Клотхо ген је пролазно регулисан током 14 дана. Значајно побољшан (170-преструко) израз -Клотхо мРНА на дан 3 може се приписати непосредно раном ЦМВ промотору за који је познато да појачава транскрипциону активацију кодираног трансгена [38]. Међутим, у МСЦ-овима, ЦМВ би могао бити подвргнут метилацији ДНК или деацетилацији хистона што може смањити експресију трансгена [39]. Штавише, плазмиди су генерално епизоми који се не реплицирају, ограничавајући трансфер трансгена у ћелије које се деле, и узрокујући пад експресије трансгена током времена [40]. Присуство хетерохроматских маркера који потичу из бактеријских секвенциплазмид би могао даље потиснути експресију трансгена [41], што у целини доприноси пролазној експресији гена.
Један од начина који се тежи у лечењу рана које тешко зарасту је примена биоактивних скела са семеном ћелија. Један од разлога је њихова способност да промовишу брзу поправку рана. Метаболички активне ћелије у графту луче паракрине факторе и пролазе кроз диференцијацију, оркестрирајући комплексне сигналне догађаје у окружењу ране [42]. Матичне ћелије, посебно, имају јединствену способност да осете спољашње стимулусе и модулирају свој одговор да би обновиле хомеостазу [43]. Међутим, матичне ћелије губе своју матичност када се експандирају ин витро да би се створио велики број ћелија за трансплантат. Наша студија показује да се стабљика може привремено побољшати помоћу генски активиране скеле која носи ген против старења -Клотхо. Конкретно, приметили смо да је скела активирана геном против старења појачала експресију гена стабљике Оцт-4 у АДСЦ-има. Окт-4 је један од кључних транскрипционих фактора у ембрионалним матичним ћелијама и од суштинског је значаја за контролисани ембрионални развој [44]. У АДСЦ-овима, активација Оцт-4 гена може подстаћи њихов потенцијал за пролиферацију и диференцијацију [45]. Према томе, повећана експресија Оцт-4 може олакшати брзу диференцијацију АДСЦ-а на скели активираној геном у ћелије домаћина и помоћи у процесу зарастања.
Пошто смо посматрали активацију Оцт-4 гена у АДСЦ-има, онда смо проценили ангиогену моћ АДСЦ-а. Ангиогенеза је кључна за ефикасну интеграцију трансплантата са ткивом домаћина [46]. Ћелије у графту покрећу ангиогенезу путем секреције паракриних фактора. Ангиогенеза је такође кључни догађај за развој гранулационог ткива и њена активност се смањује како гранулационо ткиво сазрева [47]. Ово програмирано ограничење ангиогене активности у каснијим фазама зарастања је од суштинског значаја за контролу ожиљака и хипергранулације које могу да ометају поновну епителизацију [48]. Наш налаз такође показује да АДСЦ на скели активираној геном могу побољшати клијање ендотела и контролисати њихов раст кроз паракрину сигнализацију. Поред тога, значајно повећање метаболичке активности ендотелних ћелија и ницање као одговор на дан 3 ЦМ показују потенцијал АДСЦ-оптерећеног геном активираног скела да се брзо интегрише у ткиво домаћина. Штавише, употреба матичних ћелија ЦМ је уобичајено прихваћен приступ без ћелија за побољшање квалитетног зарастања рана [49]. Као ограничење, признајемо да би одрасле дермалне ендотелне ћелије служиле бољем ћелијском моделу за проучавање ангиогенезе; међутим, да одржимо конзистентност са нашим претходним студијама и да су ХУВЕЦ широко прихваћени као кандидати за ћелије „златног стандарда“ [50], усвојили смо тест ангиогенезе ХУВЕЦс.
Повећање активности ремоделирања фибробласта је општа карактеристика сазревања гранулационог ткива [51]. Током ове фазе, колаген ИИИ матрице се постепено замењују јачим колаген И влакнима [51]. Колагенска влакна затим подстичу контракцију ране [52], а контракција ране је неопходна за потпуно затварање ране [53]. Међутим, агресивно континуирано повећање таложења колагена И може повећати формирање ожиљака [54]. Контрола ожиљака је кључна јер може инхибирати развој других додатака коже као што су фоликули длаке, лојне жлезде и знојне жлезде, на пример, код опекотина [54]. Наш налаз показује да стари (14. дан) ЦМ из групе генски активираних скела може контролисати експресију профибротичног колагена И у одраслим дермалним фибробластима. Овај контролисани ефекат на фибробласте се десио без даљег утицаја на миграцију фифибробласта или њихову антифибротичну експресију колагена ИИИ у односу на групу без гена. Стога, предлажемо да АДСЦ-оптерећена скела активирана генима може понудити бољу контролу у ограничавању ожиљака ин виво путем контролисане експресије колагена И. Ли и сарадници су такође показали да АДСЦ ЦМ може значајно смањити експресију колагена И у фибробластима који потичу од хипертрофичних ожиљака [55]. Друга студија коју су спровели Ванг и сарадници, показала је слично смањење експресије колагена И у фибробластима добијеним од келоида [56], заједно демонстрирајући антифиброзни потенцијал АДСЦ-овог ЦМ-а.

Један од значајних налаза који смо забележили применом - Скела активирана Клотхо геном је побољшана регенерација базалне мембране у АДСЦ-има. Регенерација базалне мембране је неопходна за сазревање крвних судова и потпуну реепителизацију [57,58]. Важно је да је тренд у којем протеини ламинин(21- пута) и колаген ИВ (88- пута) су додатно регулисани што указује на повећано сазревање базалне мембране у групи скела активираних геном [59]. Осим што делује као фактор против старења [60], бета клото функционише тако да појача осетљивост на фактор раста фибробласта (ФГФ) од стране ФГФ рецептора [61]. Поред тога, утврђено је да повећање ФГФ сигнализације подстиче сазревање базалне мембране кроз таложење ламинина и колагена ИВ [62]. Стога, узимајући у обзир улогу бета клотхо као ко-рецептора ФГФ, повећано сазревање базе у групи скела активираних геном потенцијално је посредовано повећањем ФГФ сигнализације АДСЦ-а.

Компонента базалне мембране која је изузетно регулисана у групи скела активиране геном је протеин колаген ИВ. Протеин колаген ИВ представља 50 процената свих базалних мембрана [63] и обезбеђује структурну стабилност базалне мембране [59]. Међутим, старење значајно смањује експресију колагена ИВ у дермално-епидермалном споју [58,64] и недостатак колагена ИВ може подстаћи патогенезу ожиљака [65]. Дакле, наши резултати сугеришу да повећана регенеративна моћ базалне мембране скеле активираног геном напуњеног АДСЦ-има може значајно помоћи у побољшаном зарастању код старијих пацијената. Друге студије су такође показале да ЕЦМ добијен из масног ткива поседује огроман терапеутски потенцијал за поправку коже [66]. Штавише, ткивно пројектовани трансплантати богати ламинином и колагеном ИВ такође су од интереса за поправку респираторног епитела [67].
Поред профибротичке контроле према фибробластима, наша студија даље показује да АДСЦ у скели активираној генима такође изражавају 2- пута нижу експресију протеина повезаног са ожиљком -СМА [68]. Иако нисмо проценили његов утицај ин виво, смањење локалног - Експресија СМА је кључна за побољшано квалитативно зарастање [69]. Коришћење фиброзних агенаса као што је блеомицин [70] би могао бити један од начина да се боље процене анти-фибротичка својства АДСЦ/генски активиране скеле конструкта ин витро; међутим, наш фокус је био да установимо привремени терапеутски потенцијал конструкта.
Још један показатељ да АДСЦ-оптерећена скела активирана генима може побољшати квалитативно зарастање је таложење фиброзног еластинског матрикса уместо неуједначених екстрацелуларних секрета у групи скела без гена. Депозиција еластина је једна од главних активности које покрећу зарастање феталних рана без ожиљака [71]. Међутим, кожа одраслих нема таложење еластина [71]. Као такав, тропоеластин, прекурсор еластина, често се уграђује у скеле од биоматеријала за контролу ожиљака у зарастању рана [72]. Узети заједно, наши налази имплицирају да АДСЦ/ - Конструкт скеле активиран геном Клотхо може дати снажан антифибротични одговор ин виво.
4. Материјали и методе
4.1. Припрема генски активиране скеле
Скела активирана генима је развијена коришћењем 2-корак процеса. Прво, чврсте порозне колаген-хондроитин сулфатне скеле су направљене од сушења смрзавањем суспензије од колагена типа 1 говеђе тетиве и хондроитин-6-сулфата добијеног из хрскавице ајкуле (Сигма, УК). Оптимизовани процес сушења замрзавањем дизајниран да створи уједначене поре коришћен је за производњу скела [73]. На основу нашег објављеног протокола [74], скеле осушене замрзавањем су затим дехидротермално (ДХТ) третиране на 105◦Ц под вакуумом за стерилизацију и механичко побољшање. Стерилизоване скеле су затим хемијски умрежене са 14 мМ Н-(3-диметиламинопропил)-Н'-етилкарбодиимид хидрохлорида и 5,5 мМ Н-хидроксисукцинимида (2,5 моларног односа ЕДЦ/НХС) (Сигма, УК) раствора према додатно побољшати механичку стабилност [75]. Умрежене скеле су затим опране са ПБС (Гибцо, Паислеи, УК) да би се уклониле заостале хемикалије. Када су скеле биле спремне, припремљени су полиплекси у односу Н/П10 (однос азота према фосфату) мешањем унапред одређене запремине раствора разгранатог полиетиленимина (ПЕИ) са плазмидном ДНК (пДНК) који кодира за хумани бета-Клотхо ген ( -Клотхо), добијено од СиноБиологицал, Пекинг, Кина. Однос Н/П10 је изабран на основу наших претходних студија које су откриле да полиплекси формулисани у односу Н/П10 могу ефикасно да формирају мале, стабилне катјонске наночестице са плазмидима великим као ГЛуц (5,76 кб) [21,23]. Пре употребе, плазмиди су разблажени у води без ендотоксина да би се добила радна концентрацијаод 0.5µg/µЛ. Плазмид садржи хумани појачани тренутно рани цитомегаловирус(ЦМВ3) промотер за промовисање стабилне и пролазне експресије кодираног на високом нивоуген у ћелијама сисара.
Мешавина плазмида/ПЕИ је остављена да се слегне 30 минута да би се самосаставила у полиплекснаночестице. Наночестице су затим натопљене пипетом на скелеједнаке запремине раствора полиплекса по страни скеле. Укупно 2µг пДНК је билакористи се по скели за развој генски активиране скеле.
4.2. Целл Сеединг он -Клотхо геном активирана скела
Људски АДСЦ (иКСЦеллс Биотецхнологиес, Сан Дијего, Калифорнија, САД) проширени су на пасус 4 у медијуму за раст АДСЦ (кат. бр. МД0003) који је испоручила компанија. Укупно 5× 10⁵ АДСЦ (2.5× 10⁵ по страни) су затим засејане по скели без гена (контрола,n = 3) или генски активирана скела (тест,n = 3). Након што су ћелије остављене око 20 минута, додато је 2 мЛ трансфекционог медија ОптиМЕМ (Гибцо, УК), а целуларизоване скеле су инкубиране на 37◦Ц током 24 х. После 24 х инкубације, целуларизоване скеле без гена или активиране геном су пренете у нове 12- плоче са бунарима и храњене са 2 мЛ АДСЦ медијума за раст. Промена медијума је затим вршена свака 3-4 дана до 14. дана прикупљањем 1 мЛ кондиционираног медијума (ЦМ) и заменом истог са истом запремином свежег медијума. Сви ЦМ су похрањени у−80 ◦Ц до анализе.
4.3. кРТ-ПЦР анализе за одређивање - Прекомерна експресија Клотхо гена и активација функционалних гена
Да би се одредила пролазна регулација циљних гена, ћелије су сакупљене 3. (рано) и 14. (касно) дана након сејања на скелама без гена или геном активираним. Ћелије су прво лизиране коришћењем реагенса за лизу Киазол (Киаген, Германтовн, МД, УСА). Затим је додат хлороформ да би се ћелијски лизат одвојио на фазе протеина, ДНК и РНК. Користећи РНеаси Кит (Киаген, Манцхестер, УК), РНК је екстрахована, а њихов квалитет и квантитет су одређени коришћењем Мултискан Го читача плоча (Тхермо Сциентифиц, УК) са апсорпцијом постављеном на 260 нм. Геномска ДНК је затим уклоњена мешањем РНК са пуфером за брисање геномске ДНК (Киаген, Манцхестер, УК) и загревањем до 42°Ц.◦Ц 2 мин. Након тога, обављена је реверзна транскрипција да би се припремила цДНК. Дупликати цДНК по репликату (n = 3) су убачени у кРТ-ПЦР плоче, а затим је тест изведен коришћењем прајмера наведених у табели1. Промена преклопа у експресији мРНА у односу на ћелије на скели без гена израчуната је коришћењем 2−∆∆ЦТметод из просека од три понављања по групи. Хумани ГАПДХ (Хс_ГАПДХ_1_СГ, Кат. бр. КТ00079247) је коришћен као ген за одржавање домаћинства.

4.4. Анализа биоактивности секретираних фактора из АДСЦ-а даље -Клотхо геном активирана скела
4.4.1. Про-ангиогене анализе биоактивности
4.4.2. Анализа зарастања и сазревања дермалних фибробласта
После есеја ангиогенезе, истражили смо потенцију ЦМ за дермално зарастање применом есеја дермалних фибробласта одраслих људи (иКсцеллс, кат. бр. 10 ХУ-014). За ову студију, посебно смо одабрали стари ЦМ од 14. дана да бисмо проучавали његов утицај на затварање ране фибробласта током сазревања. Укупно 1× 10⁴ ћелије/бунарић у 96-плочи са бунарима су засејане и инкубиране преко ноћи у медијуму за раст фибробласта. Следећег дана, настала је рана на монослоју хоризонталним гребањем врха пипете од 200 уЛ преко бунара. Монослој је затим испран ПБС-ом да би се уклонили остаци и храњен је ЦМ. Затварање ране је забележено између 12-16 х након огреботине. Имунобојење је коришћено за проучавање експресије профибротичног колагена И (1:100, Новусбио, УК) и антифибротичног колагена ИИИ (1:100, Новусбио, УК) у фибробластима. Фибробласти су обојени родамином (1:800, Абцам, УК) за снимање Ф-актина. Имунолошко бојење је изведено као што је описано у одељку4.5, са изузетком обраде ткива и депарафинизације. И ХУВЕЦ и фибробласти су коришћени на пролазу 4.
4.5. Имунофлуоресцентно снимање протеина екстрацелуларног матрикса
После 14 дана културе, скеле без целуларних гена или активиране геном су сакупљене за детекцију депозиције матрикса коришћењем имунофлуоресценције. Обрада узорака је обављена као што је претходно описано. Укратко, скеле су прво испране ПБС-ом и фиксиране у 10 посто неутралног пуферованог формалина током 20 минута. Фиксни узорци су затим обрађени стандардним протоколом за депарафинизацију. Блокови су затим исечени на 7-µм дебеле кришке и сакупљене на набијеним слајдовима. Секције су затим депарафинизоване коришћењем ксилена, након чега је уследила рехидратација пресека са опадајућим градијентом етанола. Након тога, ћелије су пермеабилизоване са 0.2 процента Твеен-а®20 (Сигма-Алдрицх, Француска) раствор у ПБС 30 мин (10 мин прање× 3) и блокиран коришћењем 10 процента НГС-а (нормални козји серум, Инвитроген, Роцкфорд, ИЛ, САД)/5 процената БСА/0,3 М глицина (припремљен у раствору за пермеабилизацију) током 1 х. Након блокирања, плочице су испране у ПБС, а затим инкубиране на 4◦Ц преко ноћи са антителима на циљне матриксне протеине наведене у табели2. Следећег дана, слајдови су три пута испрани у ПБС-у по 2-3 мин да би се уклонила сва невезана примарна антитела. Након тога, слајдови су инкубирани или са Алека 488-коњугованим козјим анти-мишјим ИгГ (А32723, Инвитроген, УК) или Алека 594-коњугираним козјим анти-зечјим ИгГ (А11012, Инвитроген, УК) на 1: 800 разблажења на собној температури 1 х у мраку. Корак испирања је изведен као и раније и контраобојен за језгра коришћењем медијума за монтирање са ДАПИ (аб104139, Абцам, УК). Слајдови су затим снимљени помоћу флуоресцентног микроскопа (Олимпус БКС43, Јапан) на 20× објективан. Као контроле су коришћени узорци инкубирани само са секундарним антителима.

Квантификација слике
Имаге] софтвер (Имаге, НИХ, МД, УСА) коришћен је за семи-квантитативно одређивање количине експримираних протеина. За сваки маркер, константна вредност прага је прво одређена прелиминарним снимањем различитих секција. Коришћењем постављене граничне вредности, одређена је интегрисана густина (обојена област к средња вредност сиве) слика, а затим нормализована на број ћелија (ДАПИ бројање) да би се добила коначна средња густина флуоресценције по ћелији. Просек је квантификован од 8-10 насумичних слика по репликату са најмање три понављања по групи. Просеци добијени из три реплика/групе су затим коришћени за мерење релативне експресије између група.
4.6. Статистичка анализа
Сви резултати су изражени као средња вредност плус стандардна девијација. Неупарени, двострани т-тест се генерално користио за израчунавање статистичке значајности између група, где се п < 0.05 сматрало значајним
Ова студија је показала да јепротив старења -Цистанцхе активиран геном Клотхопонуде контролисане активирање регенеративног капацитета АДСЦ-а. Кључни налази ове студије су (1)пролазно побољшање плурипотенције матичних ћелија и антифиброзног одговора, (2)побољшана паракрина контрола ка ангиогенезии профибротично ремоделирање колагенау дермалним фибробластима, и на крају, (3)повећано сазревање базалне мембранеса контролом експресије протеина повезаних са ожиљцима. Коначно, ови резултати сугеришуда су АДСЦ-ови натоварени - Скела активирана Клотхо геном може имати велики потенцијал алечење широког спектра дермалних рана.

ресурси, АЛЛ, ФЈО и МБК; курирање података, АЛЛ и МБК; писање—оригинални нацрт припрематион, АЛЛ; писање—преглед и уређивање, СВЕ, ФЈО и МБК; визуализација, СВЕ; надзор,ФЈО и МБК; администрација пројекта, МБК; прибављање средстава, ФЈО и МБК Сви ауторипрочитали су и пристали на објављену верзију рукописа.
Сукоби интереса:Аутори изјављују да не постоји сукоб интереса.
Референце
1. Лаива, АЛ; О'Бриен, ФЈ; Кеогх, МБ Иновације у системима испоруке гена и фактора раста за зарастање дијабетичких рана.Ј. Тиссуе Енг. Реген. Мед.2018, 12, e296–e312. [ЦроссРеф] [ПубМед]
2. Макрантонаки, Е.; Влашек, М.; Сцхарффеттер-Коцханек, К. Патогенеза поремећаја зарастања рана код старијих особа.ЈДДГ Ј. Дтсцх. Дерматол. Гес.2017, 15, 255–275. [ЦроссРеф] [ПубМед]
3. Гангули, П.; Ел-Јавхари, ЈЈ; Бурска, АН; Понцхел, Ф.; Гианноудис, ПВ; Јонес, ЕА Анализа старења ин виво у мезенхималним стромалним ћелијама људске коштане сржи коришћењем теста јединица фибробласта који формирају колоније и фенотипа ЦД45ловЦД271 плус.Стем Целлс Инт.2019, 2019, 5197983. [ЦроссРеф]
4. Вестервеел, ПЕ; Тераа, М.; Рафифии, С.; Јасперс, ЈЕ; Вхите, ИА; Хоопер, АТ; Верхаар, МЦ Оштећена мобилизација ендотелних прогениторних ћелија и дисфункционална строма коштане сржи код дијабетес мелитуса.ПЛоС ОНЕ2013, 8, e60357. [ЦроссРеф]
5. Мурраи, РЗ; Вест, ЗЕ; Цовин, АЈ; Фарругиа, БЛ Развој и употреба биоматеријала као терапије за зарастање рана.Горети. Траума2019,
6. [ЦроссРеф] [ПубМед] 6. Ебрахимиан, ТГ; Поузоулет, Ф.; Скуибан, Ц.; Буард, В.; Андрé, М.; Рођак, Б.; Тамарат, Р. Ћелијска терапија заснована на стромалним ћелијама добијеним од масног ткива подстиче физиолошко и патолошко зарастање рана.Артериосцлер. Тхромб. Васц. Биол.2009, 29, 503–510. [ЦроссРеф]
7. Ву, И.; Цхен, Л.; Сцотт, ПГ; Тредгет, ЕЕ Мезенхималне матичне ћелије побољшавају зарастање рана кроз диференцијацију и ангиогенезу.Матичне ћелије2007, 25, 2648–2659. [ЦроссРеф] [ПубМед]
8. Фоуберт, П.; Гонзалез, АД; Теодосесцу, С.; Берард, Ф.; Доиле-Еиселе, М.; Иеккала, К.; Фрасер, ЈК Регенеративна ћелијска терапија за зарастање рана од опекотина: поређење два метода испоруке.Адв. Рана нега2016, 5, 288–298. [ЦроссРеф] [ПубМед]
9. Аси, Р.; Фостер, ТР; Хе, Х.; Стамати, К.; Баи, Х.; Хуанг, И.; Дардик, А. Испорука мезенхималних матичних ћелија у биомиметички конструисаним скелама промовише зарастање дијабетичких улкуса.Реген. Мед.2016, 11, 245–260. [ЦроссРеф] [ПубМед]
10. Јианг, И.; Цхен, Б.; Лиу, И.; Зхуфу, З.; Иан, Кс.; Хоу, Кс.; Тан, К. Ефекат колагенске скеле са ћелијама стромалне васкуларне фракције добијене од масноће на зарастање дијабетичких рана: студија на моделу дијабетичких свиња.Тиссуе Енг. Реген. Мед.2013, 10, 192–199. [ЦроссРеф]
11. Фаланга, В.; Саболински, М. Двослојни живи конструкт коже (АПЛИГРАФ®) убрзава потпуно затварање тешко зарастљивих венских улкуса.Воунд Репаир Реген.1999, 7, 201–207. [ЦроссРеф] 12. Харт, ЦЕ; Лоевен-Родригуез, А.; Лессем, Ј. Дермаграфт: Употреба у лечењу хроничних рана.Адв. Рана нега.2012, 1, 138–141. [ЦроссРеф] [ПубМед] 13. Динх, ТЛ; Вевес, А. Ефикасност Аплиграфа у лечењу дијабетичких улкуса стопала.Пласт. Рецонстр. Сург.2006, 117, 152S–157S. [ЦроссРеф] [ПубМед]
14. Еаглстеин, ВХ; Фаланга, В. Инжењеринг ткива и развој Аплиграфа®, еквивалент људске коже.Цлин. Тхер.1997, 19, 894–905. [ЦроссРеф]
15. Јианг, Т.; Ксу, Г.; Ванг, К.; Ианг, Л.; Зхенг, Л.; Зхао, Ј.; Зханг, Кс. Ин витро, експанзија је нарушила стабљику мезенхималних матичних ћелија раног пролаза за лечење дефекта хрскавице.Целл Деатх Дис2017, 8, e2851. [ЦроссРеф] [ПубМед]
16. Лиу, Ј.; Динг, И.; Лиу, З.; Лианг, Кс. Старење у мезенхималним матичним ћелијама: функционалне промене, молекуларни механизми и стратегије подмлађивања.Фронт. Целл Дев. Биол.2020, 8, 258. [ЦроссРеф] [ПубМед]
17. Ванг, В.; Ксу, Кс.; Ли, З.; Лендлеин, А.; Ма, Н. Генетски инжењеринг мезенхималних матичних ћелија невирусном испоруком гена.Цлин. Хеморхеол. Мицроцирц.2014, 58, 19–48. [ЦроссРеф]
18. Девеза, Л.; Цхои, Ј.; Лее, Ј.; Хуанг, Н.; Цооке, Ј.; Ианг, Ф. Прекомерна експресија ЦКСЦР4 изазвана полимер-ДНК наночестицама побољшава пресађивање матичних ћелија и регенерацију ткива у моделу исхемије задњег екстремитета миша.Тхераностицс2016, 6, 1176–1189. [ЦроссРеф] [ПубМед]
19. О'Бриен, ФЈ Биоматеријали и скеле за ткивно инжењерство.Матер. Данас2011, 14, 88–95. 20. Ианнас, И.; Тзеранис, Д.; Харлеи, Б.; Дакле, П. Биолошки активни скеле на бази колагена: напредак у обради и карактеризацији.Пхилос. Транс. Р. Соц. А Матх. Пхис. инж. Сци.2010, 368, 2123–2139. [ЦроссРеф]
21. Лаива, АЛ; Рафти, РМ; Кеогх, МБ; О'Бриен, ФЈ Про-ангиогени утицај СДФ-1 генски активиране скеле засноване на колагену у ангиогенези вођеној матичним ћелијама.Инт. Ј. Пхарм.2018, 544, 372–379. [ЦроссРеф] [ПубМед]
22. Лацкингтон, ВА; Рафти, РМ; О'Бриен, ФЈ Ин витро ефикасност нервног проводника активираног геном који укључује невирусне ПЕИ-пДНК наночестице које носе гене који кодирају НГФ, ГДНФ и ц-Јун.Ацта Биоматер.2018, 75, 115–128. [ЦроссРеф]
23. Тиернеи, ЕГ; Дуффи, ГП; Хиббиттс, АЈ; Цриан, СА; О'Бриен, ФЈ Развој не-вирусних ген-активираних матрица за регенерацију костију користећи полиетиленимин (ПЕИ) и скеле на бази колагена.Ј. Цонтрол. Издање2012, 158, 304–311. [ЦроссРеф] [ПубМед] 24. Лаива, АЛ; О'Бриен, ФЈ; Кеогх, МБ СДФ-1 генски активирана колагенска скела покреће функционалну диференцијацију људских Сцхванн ћелија за примену у зацељивању рана.Биотецхнол. Биоенг.2021, 118, 725–736. [ЦроссРеф] [ПубМед]