Биоактивност, биодоступност и трансформације цревне микробиоте фенолних једињења у исхрани: импликације за ЦОВИД-19
Feb 24, 2022
Контакт имејлtina.xiang@wecistanche.comза више информација
Од јануара 2020. Елсевиер је направио ЦОВИД-19 ресурсни центар са бесплатним информацијама на енглеском и мандаринском о романукорона вирус ЦОВИД-19. Ресурсни центар ЦОВИД-19 се налази на Елсевиер Цоннецт-у, јавном веб-сајту за вести и информације компаније.
Елсевиер овим даје дозволу да сва своја истраживања везана за ЦОВИД{0}} која су доступна у центру ресурса за ЦОВИД-19 – укључујући овај истраживачки садржај – одмах стави на располагање у ПубМед Централ и другим јавно финансираним репозиторијумима, као што је СЗО ЦОВИД база података са правима за неограничену поновну употребу истраживања и анализе у било ком облику или на било који начин уз навођење оригиналног извора. Елсевиер даје ове дозволе бесплатно све док је ресурсни центар ЦОВИД{5}} активан.
Апстрактан
Избијање мистериозне пнеумоније крајем 2019. године повезано је са широким истраживачким интересом широм света. Тхевирус коронаболест-19(ЦОВИД-19) циља више органа путем инфламаторних, имуних и редокс механизама и до сада није идентификован ниједан ефикасан лек за њену профилаксу или лечење. Употреба биоактивних једињења у исхрани, као што су фенолна једињења (ПЦ), појавила се као претпостављени приступ исхрани или терапији за ЦОВИД-19. У овој студији, прегледани су научни подаци о механизмима који леже у основи биоактивности рачунара и њиховој корисности у ублажавању ЦОВИД-19. Додатно,антиоксиданс, проучавају се антивирусни, антиинфламаторни и имуномодулаторни ефекти дијететског ПЦ-а. Штавише, импликације варења на претпостављене предности дијететског ПЦ-а против ЦОВИД-19 представљене су разматрањем биорасположивости и биотрансформације ПЦ-а од стране микробиоте црева. На крају, безбедносна питања и могуће интеракције ПЦ-ја са лековима и њихове импликације уЦОВИД-19расправља се о терапији.© 2021 Елсевиер Инц. Сва права задржана.Кључне речи: Коронавирус; SARS-CoV-2}}; Цурцумин; Ресвератрол; кверцетин; Оксидативни стрес; Инфламација; Имуни систем.
1. Представљање
Избијање тешког акутног респираторног синдрома крајем 2019. године резултирало је великом здравственом забринутошћу широм света. Болест узрокованакорона вирус (ЦОВИД-19)је покренут у Вухану (Кина) и проширио се широм света. Због тога је Светска здравствена организација (СЗО) прогласила болест пандемијом. До 28. априла 2021. СЗО је регистровала више од 145 милиона заражених, а број умрлих је премашио 3 милиона [172]. Патоген, нови тешки акутни респираторни синдром коронавирус 2 (САРС ЦоВ-2), припада великој породици вируса који могу да инфицирају животиње и људе, изазивајући респираторна, гастроинтестинална, јетрена и неуролошка обољења [168]. САРС-ЦоВ-2 има већу преносивост и инфективност, али нижу стопу морталитета у поређењу са другим коронавирусима (ЦоВ), као што су они који изазивају тешки акутни респираторни синдром (САРС-ЦоВ) и блискоисточни респираторни синдром (МЕРС). -ЦоВ) [93].
Већина особа заражених САРС-ЦоВ{1}} је асимптоматска или имају благе симптоме, највероватније због активације имуног система. Међутим, болест еволуира у акутни респираторни дистрес синдром (АРДС), акутне срчане компликације, синдроме вишеструке дисфункције органа, септички шок и смрт код око 20 процената инфицираних (обичних људи са неким коморбидитетом) [52]. Верује се да су ове компликације повезане са тешкиминфламаторноиоксидативни стресодговори изазвани репликацијом вируса [175].
Упркос озбиљности болести, не постоји ефикасна терапија за побољшање исхода код пацијената са сумњивим или потврђенимЦОВИД-19. У том контексту, нутриционистичке стратегије за смањење ризика или ублажавање симптома ЦОВИД-а- 19 привукле су значајну пажњу. Као нефармаколошки комплементарни приступ, суплементација исхрани нутрацеутика и пробиотика је лако доступна и не показује никакве или мало нежељених ефеката [66,67]. У том смислу, фенолна једињења (ПЦ) су се појавила као претпостављени нутритивни или помоћни терапеутици за ЦОВИД- 19 јер су ова једињења повезана са здравственим предностима против неколико патологија [47]. Штавише, ПЦ испољава пребиотичке ефекте, утичући на микробиоту црева и ублажавајући гастроинтестиналне компликације пријављене у ЦОВИД-19. ПЦ се метаболише микробиотом дебелог црева и настали производи се могу апсорбовати у цревима и имати благотворно дејство на неколико органа [149].
Упркос постојећој литератури о ефектима ПЦ-а на неколико вируса, само неколико студија је показало њихово дејство против ЦоВ-а [8,98]. Недавна студија је прегледала потенцијалну способност ПЦ-а у превенцији и терапији ЦОВИД-а-19 адресирајући молекуларне путеве модулиране ПЦ-ом [89]. Међутим, у овом прегледу није се расправљало о утицају варења и метаболизма на биорасположивост ПЦ или ефектима ПЦ метаболита добијених из цревне микробиоте на претпостављену улогу ПЦ уЦОВИД-19. Штавише, безбедносна питања и могуће интеракције са лековима нису адресиране.
Овај преглед резимира тренутне доказе у вези са биоактивним механизмима ПЦ у исхрани против манифестација ЦОВИД-19, као и утицаја биодоступности и трансформација цревне микробиоте на наводне ефекте ПЦ-а. Штавише, решени су безбедносни проблеми и интеракција рачунара са исхраном са лековима који се користе за ублажавање одређених манифестација ЦОВИД{1}}.
2. Методе
ПубМед (хттпс://пубмед.нцби.нлм.них.гов) и СциенцеДирецт (ХТТПС:// ввв.сциенцедирецт.цом) базе података су коришћене за претрагу чланака помоћу комбинације термина:вирус корона, ЦОВИД-19, САРС, МЕРС, инфлуенца, НФ-кБ, цитокинска олуја, имуномодулација, И фенолна једињења, антоцијанини, флавоноиди, изофлавони, исхрана, фитокемикалије, биоактивна једињења иоксидативни стрес. Пошто ово није био систематски преглед, критеријуми искључења и укључивања нису дефинисани. Разматрани су сви чланци до 20. августа 2020. укључујући и оне који дају релевантне податке за дискусију.
3. Преглед инфекције САРС-ЦоВ-2
ЦоВ су једноланчани РНК вируси са омотачем и инфицираним различитим врстама домаћина. Структурно, ЦоВс имају четири структурна протеина: шиљак (С), мембрану, омотач и нуклеокапсид [181]. С протеин посредује у уласку САРС-ЦоВ-2 у ћелију домаћина везивањем за рецептор ензима који конвертује ангиотензин 2 (АЦЕ2) у ћелијама домаћина [145]. Унос ЦоВ активира трансмембранску протеазу серин 2 (ТМПРСС2); ово је, заједно са АЦЕ2, главна детерминанта уласка овог вируса [145].
Репликацију ЦоВ посредује РНК полимераза за производњу полипротеина. Ове полипротеине обрађују протеазе вируса, протеаза слична папаину (ПЛПро) и главна протеаза серина (протеаза слична химотрипсину-3ЦЛПро). Затим, вирусна гласничка РНК (мРНА) се користи за конструисање вирусних протеина (сазревање) који се накнадно ослобађају [185]. Хеликаза (Нсп13) је високо очуван ензим у свим ЦоВ и кључна је за репликацију вируса, што је чини обећавајућом метом за антивирусне терапије [137].
Након инфекције САРС-ЦоВ-2, повећање вирусног оптерећења узрокујеинфламаторноцитокинска олуја, ослобађање цитокина ван контроле, што доводи до хиперинфламаторног стања код домаћина [96]. Нуклеарни фактор капа Б (НФ-κБ) игра значајну улогу у регулисању експресије мноштва гена укључених у имунолошке и инфламаторне одговоре [176]. Једном активиран, НФ-κБ пут такође промовише диференцијацију Т и Б ћелија [92,117].
Један од главних путева за активацију НФ-ĸ након ЦоВ инфекције је пут примарног одговора мијелоичне диференцијације 88 (МиД88) кроз рецепторе за препознавање образаца (ПРР). Овај пут индукује различите проинфламаторне цитокине, укључујући интерлеукин (ИЛ)-6 и ТНФ- [60,153]. АЦЕ2 се ендоцитозира заједно са САРС-ЦоВ-2, што доводи до смањења АЦЕ2 на ћелијама, праћеног повећањем серумског ангиотензина ИИ (Анг ИИ) [61]. Анг ИИ делује и као вазоконстриктор и про-инфламаторноцитокин преко Анг ИИ-рецептора типа 1 (АТ1Р). Анг ИИ-АТ1Р оса активира НФ-ĸ и индукује фактор некрозе тумора- (ТНФ-), рецептор епидермалног фактора раста (ЕГФР) и растворљиви облик ИЛ-6 рецептора (СИЛ-6Р) преко дезинтегрин и металопротеаза 17 (АДАМ17) [60,61,153]. Дакле, што је вирусно оптерећење веће, то је нижа концентрација АЦЕ-2 због везивања вируса, што узрокује повећање нивоа Анг ИИ у серуму, активирајући тако НФ-ĸ пут. Извештава се да одређени глукокортикоиди, као што су метилпреднизолон, преднизон и дексаметазон, инхибирају активацију НФ-κ и користе се у лечењуЦОВИД-19у неколико земаља [150]. Према томе, супстанце са истим механизмом деловања би биле важни претпостављени агенси за обуздавање ове болести.
Прекомерна производња реактивних врста кисеоника (РОС) и депривацијаантиоксидансМеханизми су кључни догађаји за репликацију вируса и последичну болест која је повезана са вирусом [21,33]. Поред тога, варијације у ћелијском пХ, смањење нивоа редукованог глутатиона (ГСХ) и активност породице НАДПХ оксидазе (НОКС) су важни догађаји. Производња РОС добијена од НОКС4- модулисана је АЦЕ2 [21,33]. Штавише, слободни радикали, као што су супероксид ањонски радикал (О2•–), хлор оксид (ЦлО–), азот оксид (НО) и пероксинитрит (ОНОО–) могу бити узрок смрти изазване вирусом пнеумоније [173]. Поред тога, оксидативни стрес настаје не само због ослобађања РОС-а, већ и због прооксидантних цитокина, као што су ТНФ- и ИЛ-1, који се ослобађају активацијом фагоцита [141].
Оксидативни стресигра кључну улогу у патогенезиЦОВИД-19. Он одржава цитокинску олују, као и погоршава хипоксију, укључујући митохондријалну дисфункцију [18]. Интеракција између РОС и цитокинске олује генерише самоодрживи циклус између олује цитокина и оксидативног стреса, што доводи до мултиорганског отказа код тешких пацијената са ЦОВИД-19 чије стање напредује до сепсе и шока [18,173].
Нрф2-посредовао јеантиоксиданссистем је суштински механизам за заштиту ћелија од оксидативних повреда. Под оксидативним стресом, фактор транскрипције Нрф2 (фактор 2 повезан са нуклеарним фактором еритроида 2-) се транслоцира у језгро и координира активира цитопротективне гене против оксидативног стреса (ОС) везивањем заантиоксидансреактивни елемент (АРЕ) у промоторском региону ДНК. Поред тога, Нрф2 регулише гене укључене у имунитет и инфламацију, као и у механизме који утичу на осетљивост вируса и репликацију респираторних и нереспираторних инфекција [73,79,121,152,39,86].
ЈедномЦОВИД-19показало се да циљају више органа путем инфламаторних, имунолошких и редокс механизама, биоактивна једињења у исхрани која модулирају ове механизме могу бити нутритивна алтернатива за контролу тежине болести.
4. Потенцијална улога рачунара у манифестацијама САРС-ЦоВ-2
ПЦ има најмање један ароматични прстен са једном или више везаних хидроксилних група. Према својој хемијској структури, могу се поделити у неколико класа: фенолне киселине, танини, лигнани, флавоноиди, стилбени, кумарини и куркуминоиди (додатни материјал, сл. С1). Они су производи секундарног метаболизма биљака, обезбеђујући основне функције, укључујући заштиту биљака од биљоједа и микробних инфекција, привлачност за опрашиваче и животиње које распршују семе, алелопатске ефекте, УВ заштиту и сигналне молекуле током формирања чворова корена који фиксирају азот. [56,32]. У људској исхрани ПЦ је одговоран за ефекте на здравље због свогантиоксиданс, антиинфламаторна, имунолошка и пребиотичка својства [151]. Све већи број доказа сугерише да скромни дугорочни унос ПЦ може имати повољан утицај на инциденцу хроничних болести ([114]; Пакуетте, 2017; [130]). Упркос неколико студија људске интервенције о утицају ПЦ на превенцију и евентуално лечењеЦОВИД-19, већ је пријављено да ова једињења показују антивирусну активност против ЦоВ инфекције, као и јакуантиоксиданси антиинфламаторна својства, што указује на њихову потенцијалну улогу у ублажавању ове заразне болести.
4.1. Антивирусни ефекат ПЦ против ЦОВ инфекција
Добар антивирусни агенс треба да спречи раст вируса у инфицираним ћелијама тако што инхибира њихово везивање, продирање, уклањање омотача, репликацију генома и експресију гена. Табела 1 сумира студије о антивирусним ефектима ПЦ против ЦоВ.
4.1.1. Теа ПЦ
ПЦ је главна биоактивна компонента Цамеллиа синенсис Л., чији се листови користе за припрему зеленог и црног чаја [36]. Недавно је прегледана антивирусна активност зеленог и црног чаја ПЦ у профилакси и лечењу ЦОВИД-19 [112].
Студије молекуларног спајања (рачунарске процедуре за тражење лиганда који се уклапају у место везивања протеина) откриле су {{0}}изотеафлавин-3-галат, теафлавин-3,3-галат, и танинска киселина као ефикасни инхибитори 3ЦЛПро (ИЦ50 < 10="" µм)="" [22],="" што="" би="" наводно="" утицало="" на="" репликацију="" цов.="" истраживачи="" су="" известили="" да="" је="" група="" галата="" везана="" за="" 3'="" позицију="" важна="" за="" интеракцију="" са="" 3цлпро.="" још="" једна="" недавна="" ин="" силико="" студија="" открила="" је="" снажну="" интеракцију="" епигалокатехин="" галата="" (егцг),="" епикатехин="" галата="" (екг)="" и="" галокатехин-3-галата="" (гцг)="" са="" једним="" или="" оба="" каталитичка="" остатка="" 3цлпро="" [54].="" штавише,="" предвиђено="" је="" да="" су="" комплекси="" између="" протеазе="" и="" ових="" пц="" високо="" стабилни.="" теафлавин,="" једињење="" одговорно="" за="" наранџасту/црну="" боју="" црног="" чаја,="" је="" снажан="" инхибитор="" рнк="" полимеразе="" сарс-цов-2="" [94].="" катехин="" галат="" (цг)="" и="" галокатехин="" галат="" (гцг)="" показали="" су="" високу="" инхибиторну="" активност="" против="" сарс-цов-2="" н="" протеина="" на="" начин="" зависан="" од="" концентрације="" и="" утицали="" су="" на="" репликацију="" вируса.="" ови="" пц="" у="" концентрацији="" од="" 0,05="" µг/мл="" су="" показали="" више="" од="" 40="" процената="" инхибиторне="" активности="" на="" квантним="" тачкама="" коњугованој="" рнк="" олигонуклеотидима="" дизајнираном="" чипу="">

4.1.2. Куркумин
Куркумин је предложен као потенцијална опција лечења за пацијенте са ЦОВИД-19 [187] јер инхибира АЦЕ2 и сузбија улазак САРС-ЦоВ-2 у ћелије [158]. У другој студији молекуларног спајања, куркумин је показао инхибиторни ефекат на САРС-ЦоВ-2 С протеин и његов ћелијски рецептор АЦЕ2, са већим афинитетом од лекова као што су нафамостат и хидроксихлорокин [105]. При ЕЦ50 већем од 10 µМ, куркумин је инхибирао репликацију вируса смањењем броја С протеина присутних у култури Веро Е6 ћелија инфицираних САРС-ЦоВ [169].
4.1.3. Ресвератрол
Заштитни ефекат ресвератрола против више вируса је недавно прегледан [1]. Ресвератрол се стабилно везује за вирусни протеин/АЦЕ2 рецепторски комплекс САРС-ЦоВ-2, што указује на то да је обећавајући агенс против ЦОВИД-19 тако што омета протеин С вируса [162]. Поред тога, стилбен је смањио експресију Н протеина у САРС-ЦоВ-2 и смањио апоптозу Веро Е6 ћелија. Штавише, ресвератрол је ублажио смрт ћелија Веро Е6 изазвану МЕРС-ЦоВ, највероватније због антивирусног ефекта јер су нивои МЕРС ЦоВ РНК и титра вируса били нижи у ћелијама третираним ресвератролом (150–250 µМ) [91].
4.1.4. кверцетини сродних ПЦА
недавни преглед је представио доказе за употребукверцетинзаједно са витамином Ц у терапији и профилакси
ЦОВИД-19 (Цолунга [15]).кверцетинје идентификован на екрану суперкомпјутера СУММИТ за прикључивање лекова и анализа обогаћивања генског скупа експеримената са профилисањем експресије као добар терапеутски кандидат против инфекције САРС-ЦоВ-2 [55]. Према овом систему,кверцетининхибирао експресију неколико потенцијалних гена који промовишу инфекцију ЦОВ [55]. Поред тога, студије пристајања су показале да се мирицетин и фитомедицина Екуивир који садржи мирицетин везују за АЦЕ2 рецептор и спречавају ЦОВИД-19 изазван САРС-ЦоВ-2- [119].кверцетининхибирао 3ЦЛПро из МЕРС-ЦоВ (ИЦ50=34.8 µМ), док није откривена инхибиторна активност против МЕРС-ЦоВ ПЛПро [124]. Други ПЦ који се односе на кверцетин, као што су мирицетин и скутеларин, показали су инхибиторно дејство против САРС-ЦоВ хеликазе [183]. Лутеолин, ПЦ који је структурно повезан са кверцетином, ефикасно је инхибирао улазак дивљег типа САРС-ЦоВ у ћелије Веро Е6 [182]. У недавној студији, кинески лек Лианхуакингвен, који садржи кверцетин, лутеолин и кемпферол, инхибирао је репликацију САРС-ЦоВ-2 са вредношћу ИЦ50 од 411,2 µг.мЛ–1 у Веро Е6 ћелијама [138].
4.1.5. ПЦ из разних извора
Екстракт Самбуцус нигра је извор неколико антоцијанина (цијанидин {{0}}самбубиозид који чини скоро половину њих) и кверцетин 3-рутинозид [161]. Екстракт С. нигра (0.004 г/мЛ) смањио је титар вируса инфективног бронхитиса (ИБВ). Овај вирус је патогени пилећи коронавирус, а оштећење вирусне мембране је највероватнији механизам који су пријавили радници, компромитујући структуру омотача и формирање везикула [23]. Форситхиа суспенса Вахл. се широко користи у традиционалној кинеској медицини и богат је форситозидом А. Овај ПЦ је инхибирао ЦЕК инфекцију ИБВ-ом на начин који зависи од дозе (0,16–0,64 мМ). Директан вируцидни ефекат је примећен када је примењен ПЦ
пре ИБВ-а, али не и када су ћелије претходно инфициране [90]. Папирифлавонол А, присутан у Броуссонетиа папирифера, је најснажнији инхибитор ПЛПро, са ИЦ50 вредношћу од 3,7 µМ [124]. Други ПЦ из исте биљке (брусокхалкон Б, брусокхалкон А, 4-хидроксиизолонхокарпин, папириффлавонол А, 3 -(3-метил бут-2- енил)-3,4,{{ 12}}трихидроксифллаван, казинол А, казинол Б, брусофлаван А, казинол Ф и казинол Ј) били су јачи против ПЛПро него против 3ЦЛПро. Студија молекуларног спајања открила је да хесперидин, мандарина и нарингенин из Цитрус сп. представио висок афинитет за домен који се везује за рецептор из С протеина и за домен протеазе из АЦЕ2 ћелије домаћина [158].

4.2. Антиоксидативна својства
Антиоксидативни капацитет ПЦ-а је широко истражен последњих година. Често представља основу за неколико њихових заштитних ефеката на живе ћелије. Механизми који леже у основи антиоксидативног капацитета ПЦ-а укључују способност хелирања металних јона, уклањање РОС-а и заштиту антиоксидантне одбране [103].
4.2.1. Директна антиоксидативна својства
Способност директног чишћења ПЦ-а се испољава или учешћем у реакцијама које укључују донирање једног електрона (тј. као Х) или редукцијом хидропероксида у алкохол. Ово спречава стварање хидроксилних или алкоксилних радикала [45]. Антиоксидативна активност ПЦ је директно повезана са њиховом хемијском структуром [5]. Присуство -ЦХ2ЦООХ и -ЦХ=ЦХЦООХ група на бензенском прстену у фенолним киселинама појачава њихову антиоксидативну активност у поређењу са -ЦООХ групом (додатни материјал, слика С1). Поред тога, метоксилне (-ОЦХ3) и фенолне хидроксилне (-ОХ) групе промовишу антиоксидативне активности ове класе ПЦ [25]. За флавоноиде, најважнија структурна карактеристика која доприноси високом капацитету чишћења је хидроксилна структура Б прстена [139] (додатни материјал, слика С1). Хидроксилне групе на овом прстену донирају водоник и електроне за стабилизацију РОС, укључујући хидроксил и пероксил радикале, стварајући радикални облик антиоксиданса са већом хемијском стабилношћу од почетног радикала. Формирање ових релативно дуговечних радикала може да модификује оксидације посредоване радикалима [127] које су умешане у неколико болести, укључујући инфекцију САРС-ЦоВ{18}}. Поред тога, способност хелатирања метала може допринети антиоксидативним својствима ПЦ-а. Флавоноиди представљају јаке нуклеофилне центре са високим афинитетом за металне јоне; они су примарни катализатори одговорни за производњу РОС у ћелијама [48].
4.2.1.1. Студије засноване на ћелијама.
Прекомерни нивои РОС заједно са смањењем антиоксидативне одбране изазване САРС-ЦоВ-2 инфекцијом изазивају штетне ефекте на функције плућних ћелија (епителне ћелије плућа и ћелије ендотела) и црвених крвних зрнаца (РБЦ) (утичу на ћелијску мембрану и функционалност хем групе), што узрокује хипоксичну респираторну инсуфицијенцију уочену у најтежим случајевима ЦОВИД-19 ([83]; [115]). Стога, хватачи слободних радикала, као што је ПЦ, могу бити корисни ко-адјувантни терапеутици за већину рањивих пацијената.
Табела С1 (Допунски материјал) представља неке ПЦ са антиоксидативним својствима уоченим у неколико ћелијских линија, укључујући ћелије епитела плућа и ендотела, и еритроците. Конкретно, стилбене ресвератрол игра потенцијалну терапеутску улогу у епителним ћелијама плућа ублажавањем оксидативног стреса насталог након инфекције Псеудомонас аеругиноса [19] и Стрептоцоццус пнеумониае [188]. Антиоксидативни ефекат ресвератрола је такође демонстриран у и) ендотелним ћелијама крвних судова плућа, где је 0.1 до 10 µМ једињења атенуисало ХМГБ1-индуковано митохондријално оксидативно оштећење и штитило ендотелну баријеру плућа [35 ] и у ии) еритроцитима, где је 100 µМ једињења спречило ћелијску оксидацију коју генерише Х2О2 [135]. Антиоксидативни потенцијал ресвератрола против Х2О2-индукованог оксидативног стреса у еритроцитима је потенциран интеракцијом других ПЦ присутних у екстракту црног вина [154].
Као што је приказано у табели С1 (додатни материјал), ПЦ из маслиновог уља, зеленог чаја и цитрусног воћа показао је заштитни антиоксидативни ефекат на епителне ћелије плућа и еритроците. Међу одређеним ПЦ маслиновим уљем, 3,4-дихидрокси фенил етанол-еленолна киселина и хидрокситиросол су испољили највећу заштитну активност при 3 µМ у оксидативном стресу изазваном ААПХ у еритроцитима [123]. Олеуропеин (462,5 µМ) је смањио статус оксидативног стреса епителних ћелија плућа А549, док је овај ефекат био израженији када је једињење инкапсулирано у наноструктуриране липидне носаче [63]. Међу зеленим чајем ПЦ, ЕГЦГ (30 µМ) најефикасније је потиснуо хемолизу изазвану ААПХ у еритроцитима [85] и флфлавоноидну фракцију сокова од поморанџе и бергамота (која је садржала виценин{13}}, неохесперидин, нарирутин, нарингин, хесенин и нобилетин) смањила је генерисање РОС у епителним ћелијама плућа [43].
4.2.1.2. Хуман студије.
Антиоксидативна активност ПЦ је углавном испитивана или ин витро или ин виво на животињским моделима [41,103], док су студије на људима, односно клиничка испитивања још увек ограничена. Табела С2 (Допунски материјал) сумира студије о антиоксидативним ефектима неких од одабраних ПЦ код људи. Могућност директног антиоксидативног деловања ин виво је увек била доведена у питање јер захтева присуство ПЦ на тачном месту формирања РОС. Ово присуство може бити ограничено ниском биорасположивошћу ПЦ, што се у великој мери приписује њиховој слабој апсорпцији у цревима, брзој метаболизацији и брзој елиминацији [24]. Метаболизам и биодоступност ПЦ-а [30,103] су кључни аспекти које треба узети у обзир за свеобухватнију процену ефекта ових једињења на унапређење здравља, као што је даље дискутовано у одељку 6. Ипак, одређене студије су спроведене коришћењем хране богате антиоксидансима и напици који су показали да ПЦ из чајева (црног и зеленог), вина, грожђа, маслиновог уља, бобичастог воћа и воћа и поврћа побољшава антиоксидативни статус (антиоксидативна активност плазме) код здравих испитаника (додатни материјал, табела С2).
4.2.2. Генетска модулација ензимске антиоксидативне одбране
Недавно је објављено да механизми деловања ПЦ-а укључују процесе више од директног чишћења РОС-а. На пример, ова једињења и) активирају факторе транскрипције укључене у Нрф2-АРЕ пут и индукују антиоксидативне ензиме, ии) показују ксенохорметички ефекат и иии) побољшавају ћелијску хомеостазу због своје активности везивања за пептиде и протеине [155] .
Иако су недавне студије известиле о потенцијалној употреби одређених рачунара у лечењу ЦОВИД-19, оне су углавном биле фокусиране на механизме антивирусног деловања [101]. Затим, ефекти ПЦ-а на ендогени антиоксидативни систем модулацијом Нрф2 пута [77] и његове импликације на терапију ЦОВИД-19 једва су разматрани. ПБ125, фитокемијски дијететски суплемент који садржи мешавину екстраката са карнозолом (6 процената) и карнозинском киселином (15 процената) из Росмаринус Оффициналис, витхаферин А (2 процента) из Витханиа сомнифера и лутеолина (98 процената) из Сопхора јапоница у односу од 15:5:2 (м/м/м) и екстрахован са 50 мг мешаног праха по мЛ у етанолу, био је снажан активатор Нрф2 у концентрацијама у распону од 4 до 22 µг/мЛ у ћелијској линији ХепГ2 [65] . Штавише, ПБ125 је смањио експресију мРНК АЦЕ2 и ТМПРСС2 у концентрацији од 16 µг/мЛ у ХепГ2 ћелијама из људске јетре [107]. Поред тога, ПБ125 је значајно смањио регулацију 36 гена који кодирају цитокине у примарним ендотелним ћелијама плућне артерије стимулисаним ендотоксином. Узимајући у обзир да је неколико од ових цитокина идентификовано у „олуји цитокина“ уоченој у фаталним случајевима ЦОВИД-19, студијска група је сугерисала да активација Нрф2 значајно смањује интензитет олује код пацијената погођених ЦОВИД-19 [107].
ПЦ модулира ендогени антиоксидативни систем током одређених вирусних инфекција [80]. Орална суплементација са кверцетином (1 мг/дан током 5 узастопних дана) паралелно са инстилацијом вируса грипа повећала је активности каталазе (ЦАТ) и супероксид дисмутазе (СОД) и концентрацију ГСХ. Према томе, кверцетин би могао да заштити плућа од РОС произведених током инфекције вирусом грипа обнављањем ендогених антиоксиданата. Кверцетин (20 µг/Л) је истовремено индуковао транслокацију Нрф2 из цитосола у језгро и експресију хем оксигеназе (ХО-1) и НАД(П)Х кинон дехидрогеназе 1 (НКО1) (други ензими регулисани Нрф2 пут) у алвеоларним макрофагима, што сугерише да је суплементација са кверцетином била корисна у лечењу респираторних вирусних инфекција [179]. Сходно томе, повећана антиоксидативна одбрана активирањем Нрф2 флавоноидима је дискутована [143] и вероватно доприноси њиховом антиинфламаторном својству. Штавише, неколико других студија је показало да флавоноиди модулирају инфламаторни одговор активирањем путева који индукују транскрипцију антиоксидативних и одбрамбених система за детоксикацију [131]. Ова интеракција између антиоксидативних и антиинфламаторних ефеката ПЦ-а појачава њихову наводну корисну улогу против манифестација САРС-ЦоВ-2 инфекције.
4.3. Имуномодулаторни и антиинфламаторни ефекти
Имуномодулаторна способност ПЦ-а је доказана његовом способношћу да модулише НФ-к пут потискивањем активације ИКК или спречавањем везивања НФ-κБ за ДНК. Поред тога, ПЦ модулира експресију проинфламаторних гена и производњу цитокина, осим што утиче на неколико популација имуних ћелија [165,174].
Природне ћелије убице (НК), Т и Б ћелије су посебно важне за борбу против ЦОВИД-19 инфекције јер су кључни играчи у имунолошком одговору против бактерија и вируса. Лимфопенија (тј. низак број Т, Б и НК ћелија) је један од знакова ЦОВИД- 19 инфекције. Стога су релевантни терапеутски или дијететски агенси који повећавају број имуних ћелија [95].
Примена ПЦ-а (25–100 мг/кг т.м.) добијеног од Цассиа аурицулата повећала је број Т и Б ћелија, као и пролиферацију и осетљивост Т ћелија код старијих пацова [71]. Ресвератрол (2,5 µг/мЛ) не само да је повећао проценат ЦД4 плус и ЦД8 плус Т ћелија, већ је стимулисао и активност ЦД8 плус Т лимфоцита и НК ћелија [42]. Хонокиол, ПЦ екстрахован из коре дрвета магнолије, у дози од 120 мг/кг т. Ин витро и ин виво студије су показале да ЕГЦГ инхибира миграцију моноцита и повећава популацију регулаторних Т-ћелија [110,166].
Вишеструки ПЦ, као што су нарирутин [58], бутеин [69], транс цинамалдехид и 2-метоксицинамалдехид [134], хидрокситиросол [9], камебацетал А [64], камебакаурин [64], ексцисанин А [64], описано је да камебанин [64], пицеатанол [12], нарингин [2] (Ахмад ет ал., 2014), синапинска киселина [186] и малвидин [31] инхибирају активацију НФ-к пута. Поред изолованог ПЦ-а, биљни екстракти који садрже више ПЦ-ја, наиме фенолне киселине, флавоноиде, па чак и прекурсоре ПЦ-а као што су кининске и шикимичне киселине, инхибирају НФ-к пут ин витро у концентрацијама у распону од 10 до 300 µг/мЛ [126,189] .
Цитокинска олуја, масовно лучење проинфламаторних цитокина, један је од најгорих знакова ЦОВИД-19 патологије, који често доводи до великих компликација [27,96,111]. Сходно томе, студије су показале да ПЦ може инхибирати лучење проинфламаторних цитокина у неколико стања. На пример, каемпферол (28,62 µг/мЛ) је значајно смањио концентрацију ИФН-а у хуманим културама целе крви, док је олеуропеин (54,05 µг/мЛ) смањио концентрацију ИЛ-1 [113]. Ресвератрол је смањио нивое ТНФ-а и ИЛ-6 ин виво (100 мг/кг т. 49]. Штавише, секреција ТНФ- и ИЛ-6 је смањена у људским примарним моноцитима олигонолом (25 µг/мЛ), мешавином ПЦ ниске молекуларне тежине добијеном из воћа личија [88]. У концентрацијама у распону од 10,8 до 61 µг/мЛ, кверцетин, фисетин, апигенин, ресвератрол и рутин инхибирају производњу ИЛ-6, док куркумин и делимично фисетин (7,4 и 11,4 µг/мЛ, респективно) потискују производњу ТНФ- у макрофагима инфицираним вирусом денга (ДЕНВ-2) [70]. Поред тога, фисетин, апигенин и ресвератрол су смањили производњу ИЛ-10, док су рутин и фисетин инхибирали производњу ИФН-а [70]. Све у свему, ови подаци су показали да имуномодулаторна и антиинфламаторна својства дијететског ПЦ-а подржавају могућу улогу помоћних нутритивних стратегија заснованих на ПЦ-у у борби против упалне олује карактеристичне за ЦОВИД-19, осим што ублажавају компликације повезане са овом упалом .

5. Људске студије о употреби рачунара у ЦОВИД-у-19
Иако ретке, одређене студије које су у току истражују терапеутски потенцијал ПЦ-а за пацијенте са ЦОВИД-19. У рандомизованој, двоструко слепој, плацебом контролисаној студији, пацијенти са ЦОВИД-19 који су примали дневну дозу од 160 мг нано-мицеларног облика куркумина током 14 дана пријавили су смањење ИЛ-6 и ИЛ{{ 8}} експресија и секреција у серуму у поређењу са плацебо групом [159]. Тренутно су на ЦлиницалТри алс.гов регистроване три клиничке студије које користе рачунар за циљање упале изазване ЦОВИД-19. Једно од ових испитивања ће проценити употребу дијететског суплемента који садржи молекуларни комплекс куебрацхо, екстракт танина кестена и витамин Б12 [128]. Друга студија има за циљ да процени употребу екстракта Цаесалпиниа Спиноса богатог ПЦ-ом, са високом антиоксидативном и антиинфламаторном активношћу, у смањењу производње проинфламаторних цитокина (нпр. ИЛ-6) [99]. Треће клиничко испитивање има за циљ да процени безбедност и ефикасност колхицина и биљних фенолних монотерпенских фракција када се додају стандардном третману код пацијената са ЦОВИД-19 [109]. Још увек нису објављени резултати о овим испитивањима.
6. Биорасположивост дијететског ПЦ-а
Биорасположивост ПЦ у исхрани треба узети у обзир за свеобухватнију процену утицаја ПЦ на здравље [30,103]. Упркос томе што је најзаступљенија биоактивна фитокемикалија у људској исхрани, биорасположивост дијететског ПЦ је обично изузетно ниска, у распону од 1 до 10 процената почетне количине. Биорасположивост ПЦ зависи од неколико фактора, као што су прерада хране (кување), фактори везани за храну (матрица хране) и интеракције са другим једињењима (масти и алкохол), и фактори везани за домаћина, укључујући цревне факторе [30].
Дијететски ПЦ се апсорбују у танком цреву (слика 1), што резултира концентрацијом у плазми која ретко прелази 1–10 µМ [155]. Међу свим класама ПЦ, флавони, као што су кверцетин и рутин, имају ниску стопу апсорпције (0,3–1,5 процената), док флавоноли (катехини), флаванони (нарингенин), генистеин и антоцијанини показују високу биорасположивост (3–30 процената) [155]. Танини високе молекуларне тежине се слабо апсорбују због своје релативно велике молекуларне величине. ПЦ везан за шећер показује ограничену биорасположивост у свом природном облику. Неки од њих се хидролизују у цревима, што доприноси високој варијабилности биорасположивости ПЦ [72].

Поред ниске апсорпције, ПЦ у исхрани се у великој мери метаболише у цревним и хепатичним ћелијама. Стога су присутни у људској плазми и ткивима не само у свом природном облику већ и као фенолни метаболити. Ови метаболити су постали предмет неколико истраживачких студија које показују корисне ефекте (моћни антиоксидативни агенси) њихових различитих облика (глукуронизованих, сулфатираних или метилираних) [144].
Након оралне примене, ресвератрол се апсорбује пасивном дифузијом или формирањем комплекса са мембранским транспортерима након чега се ослобађа у крвоток. У крвотоку су углавном присутни као глукуронид, сулфат или у слободном облику [50]. Концентрација ресвератрола у људској плазми зависи од унесене дозе; већа је када се примењује ујутру [4]. Поред тога, његова примена са рибозом или пиперином побољшава његову биорасположивост, док нису пријављене промене када се узима са или без алкохола или у комбинацији са другим ПЦ као што је кверцетин [132]. Насупрот томе, његова конзумација са оброком са високим садржајем масти угрожава његову биорасположивост [132]. Микробиота људског црева игра важну улогу у интериндивидуалним варијацијама у вези са биодоступношћу ресвератрола, а сојеви као што је Слацкиа екуолифациенс сп. и Адлерцреутзиа екуолифациенс сп. идентификовани су као произвођачи дихидро ресвератрола [14].
Биорасположивост куркумина је значајно ниска – око 50 нг/мЛ се налази у људској плазми након оралне примене (10–12 г куркумина) [6]. Чини се да су главни разлози који доприносе ниском нивоу куркумина у плазми и ткивима његова ниска растворљивост у води, лоша апсорпција, брз метаболизам и брза системска елиминација [6]. Да би се побољшала његова биодоступност, коришћени су различити приступи као што је употреба адјуванса, нпр. пиперина који омета глукуронидацију, употреба липозомалног куркумина, употреба наночестица куркумина, употреба куркумин фосфолипидних комплекса и употреба структурних аналога куркумина [ 6].
Биорасположивост кверцетина у великој мери зависи од врсте матрице хране. Конкретно, кверцетин агликон добијен из праха екстракта коже лука је знатно биодоступнији од оног добијеног из екстракта коже јабуке [87] или чак тврдих капсула пуњених прахом кверцетин дихидрата [16]. Орална биодоступност кверцетина је добро схваћена. Упркос примени високе оралне дозе кверцетина, максимална концентрација слободног агликона у плазми је само у ниском опсегу нМ због његове биотрансформације током варења, апсорпције и метаболизма [3]. Због тога се предлаже да се кверцетин може давати директно алтернативним путевима, као што је спреј за нос или грло, за лечење ЦОВИД-19 пацијената у клиничким испитивањима [171].
Процењује се да је само око 1,68 процената унетих катехина чаја присутно у људској плазми (0.16 процената), урину (1,1 проценат) и фецесу (0.42 процената) 6 сати након гутање чаја [167]. Конкретно, Ианг ет ал. известили су да су максималне концентрације у плазми за ЕГЦГ, ЕГЦ и ЕЦ биле {{10}}.57, 1,60 и 0,6 µМ, респективно, након конзумирања 3 г зеленог чаја без кофеина [177]. Да би се побољшала биодоступност катехина чаја, истражено је неколико приступа. На пример, инкапсулација катехина чаја у наночестице засноване на протеинима, угљеним хидратима и липидима побољшала је њихову стабилност, одрживо ослобађање и пропусност ћелијске мембране, што је резултирало повећаном биодоступношћу [17]. Поред тога, молекуларна модификација једињења, као што је синтеза хиперацетилованог ЕГЦГ, повећала је биорасположивост овог једињења јер је штитила хидроксилне групе на ЕГЦГ од оксидативне деградације све док се не деацетилује у свој родитељски ЕГЦГ естеразама у ћелијама, смањујући биотрансформацију и ефлукс ЕГЦГ [ 84]. Заједничка примена катехина са другим биоактивним једињењима је произвела синергистички ефекат, што је резултирало побољшаном апсорпцијом и инхибицијом ефлуксних транспортера [17].
Већина антивирусних и директних антиоксидативних ефеката дијеталног ПЦ ин витро примећена је у концентрацијама у распону од 0.1 и 640 µМ (табела 1 и додатни материјал, табела С1). Као што је горе дискутовано, системски нивои ПЦ су обично унутар нМ или ниског µМ опсега због њихове ниске биорасположивости и екстензивне биотрансформације током варења и након интестиналне апсорпције [41]. Стога, проблеми концентрације могу ограничити ин виво релевантност директних системских антивирусних и антиоксидативних ефеката ПЦ-а. Ипак, ПЦ једињења достижу концентрације унутар мМ и високог µМ опсега унутар гастроинтестиналног тракта [41], где је вероватно да ће испољити антивирусне и антиоксидативне ефекте.
7. Интеракција између рачунара и микробиоте црева: импликације за заштиту од ЦОВИД-а-19
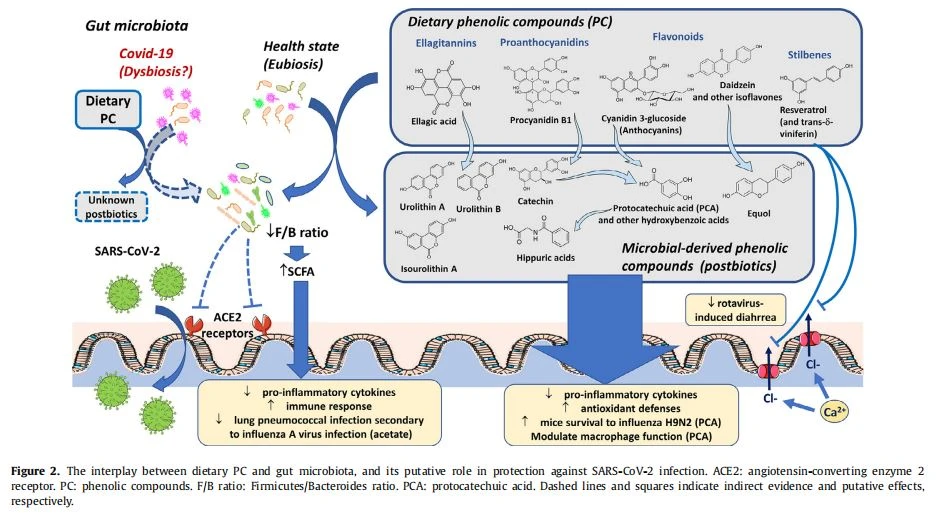
Око 90 процената ПЦ који се уносе у исхрани се не апсорбује у танком цреву и стога стиже до дебелог црева [72], где се екстензивно метаболише у цревној микробиоти у једињења мале молекуларне тежине која обично имају већу стопу апсорпције од њихових матичних једињења (Сл. 1). Многи од ових метаболита ПЦ имају биоактивне ефекте и углавном су одговорни за системске биолошке ефекте ПЦ у исхрани [28]. Стога, они испуњавају услове да се сматрају постбиотицима, односно метаболитима добијеним од микроба који имају благотворно дејство на домаћина [28]. Поред тога, интеракција између ПЦ-а и микробиоте црева модулира састав и функцију микробиома [28,72] (слика 1). Овај одељак ће се бавити начином на који би ова интеракција могла да промени биоактивна својства рачунара која су релевантна за њихове потенцијалне предности против инфекције САРС-ЦоВ{10}}.
Микробиота дебелог црева декоњугује делове гликозида, глукуронида и органске киселине ослобађајући агликоне добијене из фенола који се затим цепају фисијом хетероцикличних и ароматичних прстенова, и подвргавају се дихидроксилацији, декарбоксилацији, деметилацији, редукцији алкена28. Одређени катаболички путеви су разјашњени (слика 2) који откривају да су протокатехијске и друге хидроксибензојеве киселине главни метаболити антоцијанина и других флавоноида [28], док су уролитини главни метаболити ПЦ-а повезаних са елагинском киселином [72,129]. Проантоцијанидини се претварају у катехине који се затим катаболишу у хидроксифенил- -валеролактоне, а затим се секвенцијално претварају у следеће фенолне киселине: хидроксифенилвалеричну, хидроксифенилпропионску, хидроксифенил сирћетну, хидроксибензојеву [10] киселину [10].
Неколико системских здравствених предности дијететског ПЦ зависе од фенолних метаболита које генерише цревна микробиота. Одређени ефекти демонстрирани за ове фенолне метаболите, као што су антиоксидативна, антиинфламаторна и имуномодулаторна својства, релевантни су у контексту заштите од ЦОВИД-19 (слика 2). Изофлавони, као што су генистеин и даидзеин, се метаболишу у екуол који има антиоксидативну, антиинфламаторну, кардиопротективну, неуропротективну и естрогенску активност. У ствари, чини се да је екуол одговоран за ефекте његових матичних једињења изофлавона [28,106]. Поред тога, уролитини показују веће антиоксидативне, антиинфламаторне и антипролиферативне активности него њихова матична једињења елагитанини и елагинска киселина [144], док је 3- (3-хидроксифенил)пропаноична киселина укључена у заштитни ефекат екстракт полифенола из семена грожђа против неуродегенеративних болести [164]. Насупрот томе, антиоксидативне и антипролиферативне способности флавоноидних метаболита, односно деривата фенил пропионске, фенилсирћетне и хидроксибензојеве киселине, биле су ниже у поређењу са њиховим матичним једињењима [37,51].
Потенцијална улога ПЦ метаболита добијених из микроба против инфекције САРС-ЦоВ-2 потиче од студија о протокатехуинској киселини. Након узимања сока од бруснице код људи, нивои протокатехуинске киселине у плазми су се повећали и били су у снажнијој корелацији са антиоксидативним капацитетом плазме у односу на његов родитељ ПЦ [108]. Поред тога, модулација функције макрофага протокатехуинском киселином је углавном одговорна за антиатерогене ефекте дијететског цијанидин-3-глукозида у моделу атеросклерозе код мишева [163]. Штавише, доказано је да протокатехуинска киселина умањује инфламаторни одговор и повећава клиренс вируса и стопу преживљавања мишева изазваних вирусом грипа Х9Н2 [122].
Друго лице интеракције између ПЦ-а и микробиоте црева је преобликовање прве помоћу фенола у исхрани у ефекту сличном пребиотику [28]. Такав ефекат је имплициран у неколико предности изазваних фенолом, укључујући побољшану хомеостазу црева [104] и имуни одговор, између осталих релевантних биолошких ефеката [72] (Слика 2). Ови ефекти слични пребиотицима могу бити посебно релевантни за терапију САРС-ЦоВ-2 јер су гастроинтестинални проблеми пријављени код приближно 50 процената пацијената у мултицентричној студији у Хубеију, а дијареја је пријављена код 17 процената пацијената [57]. Додатна исхрана растворљивим дијететским влакнима, која су класични пребиотици, па чак и са пробиотицима, препоручена је за терапију исхране током опоравка критично оболелих од ЦОВИД-19 пацијената [102,118]. Штавише, ЦОВИД-19 пацијенти су испољили цревну дисбиозу коју карактерише смањење разноврсности и обиља цревне микробиоте [57,190], што би могло да представља потенцијалну мету за употребу ПЦ (Слика 2). У прилог овој хипотези, показало се да ресвератрол [29] и одређени ресвератрол олигомери [184] ублажавају дијареју изазвану ротавирусом на животињским моделима. Инхибиција епителних Ца2 плус -активираних Цл– канала доприноси анти-секреторним и антимотилитетним заштитним ефектима ових ПЦ [184] (Слика 2).
АЦЕ2 рецептори, за које је познато да посредују у уласку САРС-ЦоВ-2 у животињске ћелије [145], високо су експримирани у ћелијама гастроинтестиналног епитела (Хармер, Гилберт, Борман & Цларк, 2002). Показало се да реконституција цревне микробиоте код гнотобиотичких пацова смањује експресију АЦЕ2 у дебелом цреву у поређењу са оном код пацова без клица [178], пружајући доказ да је експресија АЦЕ2 у дебелом цреву модулисана микробиотом црева. Пошто је ПЦ повећао обиље и разноврсност цревне микробиоте у корист раста пробиотских бактерија [149], преобликовање цревне микробиоте од стране ПЦ могло би наводно да модулира улазак САРС-ЦоВ-2 у домаћина (слика 2).
Поред тога, тежина ЦОВИД-19 показала је повезаност са 23 бактеријске таксона из фекалних узорака, углавном из врсте Фирмицутес [190]. Цлостридиум рамосум и Цлостридиум хатхеваии су биле позитивно повезане са озбиљношћу ЦОВИД-19, док је бактерија Ерисипелотрицхацеае показала снажну позитивну повезаност са фекалним оптерећењем САРС-ЦоВ-2 [190]. Ове врсте Цлостридиум су наводно повезане са хуманом бактеремијом [40,46]. Поред тога, фекално оптерећење САРС-ЦоВ-2 код пацијената са ЦОВИД-19 показује инверзну повезаност са одређеним врстама Бацтероидес [190], за које се наводи да смањују експресију АЦЕ2 у мишјим цревима [53 ]. Ови подаци сугеришу да врсте Бацтероидес вероватно доприносе борби против САРС-ЦоВ-2 инфекције ометајући улазак вируса преко АЦЕ2 [190]. Према недавном прегледу, неколико намирница богатих ПЦ и ПЦ, као што су куркумин, ресвератрол, полимерни проантоцијанидини, деалкохолизовано црвено вино и зелени чај, смањују фекални однос Фирмицутес/Бацтероидес [72]. Узимајући у обзир узрочно-последични однос између цревног бактеријског профила и прогнозе ЦОВИД-19, очекује се да ће ПЦ смањити оптерећење вируса и тежину ЦОВИД-19 (слика 2).
Ин витро студије, модели на животињама и клиничка испитивања пружају гомилање доказа да ПЦ, посебно хидролизабилни и кондензовани танини, могу да испоље ефекте сличне пребиотицима промовишући раст лактобацила и бифидобактерија [28,38], који играју кључну улогу у регулацији локални и системски имуни одговори [147]. Стога се очекује да ће унос ПЦ модулирати екологију цревне микробиоте код пацијената са ЦОВИД-19 како би се омогућио уравнотежен имуни одговор против САРС-ЦоВ-2. Механизми који леже у основи пребиотичког ефекта ПЦ-а до сада нису у потпуности разјашњени, иако се предлаже да се укључе остаци шећера као извор енергије или селективни антимикробни ефекти против патогених бактерија засновани на хелатирању гвожђа, анти-адхезији и инактивацији мембранских протеина који би фаворизовао раст пробиотских бактерија и преобликовао микробиоту црева [28].
Преобликовање цревне микробиоте повећава производњу кратколанчаних масних киселина (СЦФА), као што су ацетат, пропионат и бутират, за које је показано да смањују проинфламаторне цитокине док побољшавају системски имуни одговор након апсорпције у цревима [78] (Сл. . 2). Овај механизам би могао бити посебно релевантан за сузбијање инфламаторне олује повезане са САРС-ЦоВ-2- која се обично повезује са АРДС-ом [147]. Важно је напоменути да су растворљиви ПЦ и углавном ПЦ везан за матрикс из воћа повећали производњу фекалне СЦФА ин витро [116,129] као и ин виво [28,104]. Експеримент фекалног трансфера који је недавно спроведен на мишевима показао је да су промене у микробиоти црева одговорне за пнеумококну инфекцију плућа која је последица инфекције вирусом грипа А [142]. Орална суплементација ацетатом, који је доминантна СЦФА коју производи цревна микробиота, смањила је утицај ове бактеријске инфекције модулацијом активности алвеоларних макрофага [142]. Ови подаци указују на СЦФА као релевантне терапеутске агенсе против компликација вирусних респираторних инфекција и појачавају укључивање осовине црева плућа у ове патологије (Слика 2). Оса црева и плућа обухвата двосмерну интеракцију, где на функцију и имунолошку хомеостазу плућа могу утицати метаболити из цревне микробиоте и обрнуто [26].
Дисбиоза повезана са ЦОВИД-19-[57] има потенцијални утицај на профил ПЦ метаболита добијених из микроба и стога би требало да буде пажљиво процењена када се ПЦ разматра као додатак лечењу САРС-ЦоВ-2 (Сл. . 2). Фекалне врсте Цлостридиум, које су позитивно повезане са тешким случајевима ЦОВИД-19 [190], такође су умешане у метаболизам ПЦ у цревима [28]. Штавише, нови докази откривају да међуиндивидуалне разлике у екологији цревне микробиоте резултирају различитим профилима постбиотика добијених из фенола, који би могли имати кључну улогу у биолошким ефектима ПЦ-а. За елагитанине/елагинску киселину [28] и изофлавон даидзеин [106] идентификовани су различити метаболички профили, названи метаботипови, што указује на релевантност персонализоване исхране и фармаколошке терапије.
Упркос укупном смањеном обиљу цревне микробиоте код пацијената са САРС-ЦоВ-2, постоји и повећана релативна количина опортунистичких бактерија у фецесу, као што су Ротхиа и Стрептоцоццус [57] врсте, које су обично повезане са повећаном осетљивошћу на секундарна бактеријска инфекција плућа код имунокомпромитованих пацијената [100] и пацијената који пате од других респираторних вирусних инфекција [148]. Насупрот томе, показало се да инфекција грипом модификује микробиом црева мобилизацијом имуних ћелија (Т-ћелија) добијених из плућа у танко црево, где ове ћелије стимулишу производњу ИФН-а [34]. Ови налази потврђују учешће осовине црева и плућа у повезивању гастроинтестиналних и плућних дисфункција код респираторних инфекција, укључујући ЦОВИД-19. Штавише, модулација АЦЕ2 дебелог црева микробиотом црева потврђује да је осовина црева-плућа вероватно укључена у инфекцију ЦОВИД{11}} [178]. Стога би дијетална модулација цревне микробиоте могла бити обећавајући приступ за лечење ЦОВИД-19 инфекције, као што је недавно сугерисала студија која препоручује дијетална влакна и пробиотике [26].
Као што је сажето на Слици 2, докази о којима се говори у овом одељку указују на то да микробиота црева вероватно игра кључну улогу у наводним ефектима ПЦ-а на инфекцију САРС-ЦоВ-2. Стога, микробиота црева може да обезбеди метаболичке путеве или за производњу специфичних биоактивних постбиотика добијених из ПЦ-а или да буде циљана да омогући модулацију имунолошког одговора што резултира смањењем вирусне инфекције и морбидитета. Различити постбиотици добијени из ПЦ-а показују висока антиоксидативна и антиинфламаторна својства, која би потенцијално била корисна против инфекције САРС-ЦоВ-2. Поред тога, показало се да преобликовање цревне микробиоте помоћу рачунара покреће различите механизме који би могли да допринесу смањењу инфекције САРС-ЦоВ-2, као што је смањење експресије АЦЕ2 црева, повећање регулације производње СЦФА и контрола опортунистичких бактерија . Преобликовање микробиоте црева помоћу рачунара могло би чак да модулише респираторне компликације инфекције САРС-ЦоВ-2 преко осовине црева и плућа.
8. Безбедносна питања
Поред природне појаве у воћу и поврћу, ПЦ је присутан и у адитивима за храну за бојење и здравље. ПЦ је такође доступан у облику таблета, капсула или додатака исхрани у праху. Већина ПЦ нема довољно токсиколошких студија спроведених на животињама да би се дефинисала специфична прихватљива дневна доза (АДИ) за безбедну потрошњу од стране људи. Међутим, храна богата ПЦ и ПЦ обично се сматра безбедном на основу емпиријских доказа из њихове редовне конзумације као природних састојака хране и бројних студија на животињама које откривају њихове корисне ефекте на здравље. Токсиколошке процене доступне за неколико изабраних рачунара су размотрене у наставку. Уопштено говорећи, чини се да се кверцетин добро толерише код људи када се узима орално, са значајно ниском инциденцом нежељених ефеката примећених при дозама до 1500 мг дневно [7]. У западним дијетама, процењени дневни унос кверцетина се креће од 3 до 40 мг (еквивалената агликона), док су препоручене дневне дозе кверцетин агликона путем дијететских суплемената обично око 500 мг. У 2010. години, састојак кверцетина високе чистоће сматран је ГРАС-ом („Генералли Рецогнизед Ас Сафе“) под предвиђеним условима употребе од стране Управе за храну и лекове (ФДА). У овој процени, висок унос у оквиру процењеног АДИ од 19–22 мг/кг тм такође се сматра безбедним, што је еквивалентно 1330 до 1540 мг кверцетина дневно за 70- кг одрасле особе [44] Међутим, Студија хроничне токсичности открила је да су пацови који су примали 40, 400 или 1900 мг кверцетина дневно током две године показали дозно-зависно повећање хроничне нефропатије и благо повећану инциденцу фокалне хиперплазије епитела бубрежних тубула. Штавише, већа инциденција аденома бубрега примећена је код мужјака пацова при дозама од 400 и 1900 мг кверцетина/дан [157].
Ресвератрол, који има низак унос исхраном од 6–8 мг/дан [20], присутан је у комерцијалним додацима исхрани са 50–500 мг транс-ресвератрола [140]. У једној студији, ресвератрол и нутрацеутска формулација која садржи ресвератрол (Лонгевинек) нису показали никакве знаке токсичности код Спрагуе-Давлеи пацова који су примали дневне дозе од 50 и 100 мг током 28 дана. Друга формулација која садржи транс-ресвератрол високе чистоће (ресВида) показала је ниску оралну токсичност, иако се чинило да високе дозе (2-3 г/кг тм/дан) негативно утичу на бубреге и бешику код животиња. Уочена је честа гастроинтестинална нелагодност/дијареја код људи који су примали високе дозе (2,5 г или 5 г дневно) ресвератрола током 29 дана [160]. На основу НОАЕЛ студија, дневна доза од 450 мг ресвератрола се сматрала безбедном за 60-кг појединца, користећи 10-фактор сигурности вишеструке [170].
Извештава се да је куркумин ефикасан, безбедан и подношљив против различитих хроничних болести у испитивањима на људима [81]. Клиничка испитивања која су укључивала здраве људе открила су да куркумин изазива 50 посто контракције жучне кесе у дози од 40 мг/дан [133]. Упркос томе, ЈЕЦФА (Заједнички експертски комитет ФАО/СЗО за адитиве у храни) и ЕФСА (Европска агенција за безбедност хране) утврдили су АДИ до 3 мг/кг тв за куркумин што је еквивалентно 210 мг/дан за {{6 }}кг одрасле особе [76].
ЕГЦГ је главни ПЦ у зеленом чају. Токсиколошке студије су показале образац хепатотоксичности повезан са количинама уноса од 140 до 1000 мг/дан ЕГЦГ-а [120]. 13-недељна студија на пацовима и псима је пријавила НОАЕЛ од 500 мг/кг телесне тежине дневно за ЕГЦГ [68]. Узимајући у обзир прорачуне чистоће и фактора сигурности, ова студија је генерисала АДИ од 4,6 мг/кг тм/дан за ЕГЦГ, што је еквивалентно 322 мг ЕГЦГ/дан за 70-кг одрасле особе. Друге студије о токсичности ЕГЦГ спроведене и на животињама и на људима су недавно прегледане, и пријављено је да је унос од 338 мг ЕГЦГ дневно безбедан [62]. Штавише, европске регулаторне агенције су предложиле дневне границе ЕГЦГ за суплементе, које се крећу од 300 до 1600 мг/дан [180].
Иако постојеће студије показују да су високе дозе безбедне за већину рачунара са исхраном, очекује се релевантна забринутост када се рачунар користи као помоћна терапија за труднице ЦОВИД-19 пацијенткиње. Препоручује се да се конзумација хране богате ПЦ-ом и суплемената ограничи током трећег тромесечја трудноће због њихове повезаности са дукталним констрикцијама у срцу фетуса [59]. Овај ефекат је вероватно посредован антиинфламаторним механизмима и деле га нестероидни антиинфламаторни лекови [59]. Стога, могућу појаву токсичности током приступа ПЦ исхране за терапију ЦОВИД-19 треба размотрити пре него што се пријави коначна изјава у вези са клиничком употребом ПЦ-а.
9. Интеракције са лековима
Сложене интеракције између хранљивих материја/нутријената у храни и терапеутских лекова још увек нису разјашњене. Без обзира на то, ПЦ може да промени ефикасност фармаколошких терапија утичући на апсорпцију лека и биорасположивост, пошто се ПЦ такмичи са транспортерима лекова и метаболизирајућим ензимима. Транспортери лека су углавном представљени АТП-везујућом касетом (АБЦ) и транспортерима носача раствора (СЛЦ), који играју кључну улогу у апсорпцији и диспозицији лека, чиме одређују безбедност и ефикасност лека (Ли ет ал., 2016). Ензими за метаболизам лека укључују ензиме цитокрома П (ЦИП) црева и јетре, глукуронозилтрансферазе (УГТ) и сулфотрансферазе. ПЦ може да промени фармакокинетику одређених лекова инхибицијом транспортера или модулацијом експресије транспортера и ензима који метаболишу лек. Флавоноиди, који су супстрати за УГТ, када се конзумирају у комбинацији са одређеним лековима, могу инхибирати глукуронидацију лекова као резултат компетитивне инхибиције [82].
Приликом формулисања стратегије исхране засноване на рачунару за терапију ЦОВИД- 19, интеракција ПЦ-а са бројним терапијским лековима, као што су они који се користе за контролу ЦОВИД-19 манифестација (антивирусни, антибиотици и глукокортикоиди), мора бити разматрати. Показано је да екстракт зеленог чаја (који садржи 100 µМ ЕГЦГ) инхибира транспортере лека ОАТП1А1 и ОАТП1А2 ин витро [75]. Пошто су ови транспортни протеини укључени у транспорт флуорокинолона и антиретровирусних лекова, екстракт зеленог чаја треба избегавати када се користе ови лекови [11]. С друге стране, екстракти лука и белог лука који су богати ПЦ-ом потенцирали су ефикасност стрептомицина и хлорамфеникола ин витро [97]. У једној студији, зечеви који су примали антибиотик норфлоксацин (100 мг/кг бвпо) након претходног третмана куркумином (60 мг/кг тм дневно, 3 дана, по) су показали повећане нивое норфлоксацина у плазми [125]. Практично, наставак лечења куркумином је резултирао смањењем дозе одржавања за 24 и 26 процената норфлоксацина за 26 процената [125]. Због тога се саветује опрез током дуготрајне примене куркумина и норфлоксацина како би се избегло повећање штетних ефеката норфлоксацина.
Што се тиче антивирусних лекова, флавоноиди белог лука су имали различите утицаје на хепатичку фармакокинетику саквинавира и дарунавира [13]. Штавише, хронична употреба кантариона, извора флавоноида, могла би значајно да смањи апсорпцију и биодоступност индинавира код људи. Показало се да биљке богате фенолима, наиме, кантарион и Глициррхиза ураленсис, смањују биорасположивост лекова мидазолама и лидокаина, који се користе за оротрахеалну интубацију пацијената са ЦОВИД-19 (Барнес ет ал. , 2001; Танг ет ал., 2009). Колико знамо, тренутно нису доступне студије о интеракцијама између глукокортикоида и ПЦ-а.
Поред лекова који се користе за сузбијање манифестација ЦОВИД{{0}}, лекове за континуирану употребу за пацијенте који имају коморбидитете (хроничне болести као што су дијабетес, кардиоваскуларне болести и респираторне болести) такође треба проценити на интеракцију са рачунаром. Заиста, пријављено је да појединачне или поновљене дневне дозе кверцетина од 0,6 до 300 мг кверцетина/кг телесне масе повећавају биорасположивост лекова које користе пацијенти са кардиоваскуларним обољењима, као што су дигоксин, ранолазин, валсартан, верапамил и дилтиазем. С друге стране, биорасположивост симвастатина је смањена након оралног уноса кверцетина [7]. Што се тиче управљања дијабетесом, кверцетин (10 мг/кг) је повећао биорасположивост интравенозног и орално примењеног пиоглитазона за 25 – 75 процената код женки пацова [156]. Међутим, тренутни докази о интеракцијама ПЦ са овим лековима су оскудни и стога се саветује опрез у уносу ПЦ за субјекте који су под овим терапијама.

10. Закључци
Као што је приказано на слици 3, показало се да бројни рачунари испољавају вишеструке ефекте који могу да ублаже манифестације ЦОВИД-19, укључујући антивирусне, антиоксидативне, имуномодулаторне и антиинфламаторне ефекте. Пошто је биорасположивост већине ПЦ у исхрани ограничена, генски посредовани антиоксидативни, антиинфламаторни и имуномодулаторни ефекти су највероватније одговорни за системске ефекте ПЦ против САРС-ЦоВ-2 инфекције. Без обзира на то, директни антивирусни и антиоксидативни ефекти могу се јавити у гастроинтестиналном тракту где се ПЦ јавља у високим концентрацијама. Штавише, интеракција између ПЦ-а и микробиоте црева, која укључује производњу постбиотика добијених из ПЦ-ја и преобликовање цревне микробиоте, доводи до активације различитих метаболичких и сигналних путева који наводно јачају антиоксидативни и имуни одговор домаћина против САРС-ЦоВ{{ 9}} инфекција. Важно је напоменути да је неколико ефеката и механизама о којима се расправља у овом прегледу такође релевантно за потенцијални заштитни ефекат ПЦ-а против других вирусних болести, укључујући оне изазване респираторним вирусима и ЦоВ-овима који нису САРС-ЦоВ-2.
Упркос обећавајућим циљевима који су идентификовани за коришћење ПЦ-а за сузбијање инфекције САРС-ЦоВ{1}}, безбедносна питања у вези са ПЦ-ом и њиховом интеракцијом са другим терапијским лековима морају се узети у обзир приликом израде стратегије исхране који укључује ПЦ. Поред тога, безбедна и рационална употреба рачунара за исхрану зависи од даљег разумевања како болест ЦОВИД-19 утиче на микробиоту црева и њеног потенцијалног утицаја на корисне ефекте ПЦ-а. Штавише, јединствени профил микробиома различитих људских фенолних метаботипова може дати различите одговоре, што указује на неопходност планирања персонализованих приступа.
11. Ограничења и изгледи
Иако ова студија нуди много корисних информација о наводној улози ПЦ-а у манифестацијама ЦОВИД-19, важно је ограничење ове студије, односно недостатак клиничких испитивања која процењују употребу ПЦ једињења у болести ЦОВИД{ {1}} пацијената. До сада је закључено само једно клиничко испитивање које је открило позитивне ефекте куркумина (у нано-мицеларном облику) у смањењу инфламаторних манифестација код пацијената са ЦОВИД-19 [159]. Иако се тренутно спроводе друга клиничка испитивања, она се тичу ефеката биљних екстраката који садрже ПЦ, а не ефеката изолованог ПЦ.
на ПЦ. Стога су потребне даље студије које истражују антивирусне ефекте ПЦ на животињским моделима или клиничка испитивања како би се додатно потврдили обећавајући налази ин силицо и ин витро у вези са антивирусним ефектима одређених ПЦ. Штавише, пошто ПЦ може да покаже одређени ниво токсичности и може да ступи у интеракцију са лековима који се користе у лечењу ЦОВИД-19, требало би спровести ин виво студије које одређују нивое безбедне дозе ПЦ за терапијску употребу. Када се ова евалуација заврши, следећи корак би требало да буде извођење клиничких испитивања на људима како би се утврдила безбедност употребе ПЦ Инхуманс.
Неколико потенцијалних заштитних механизама ПЦ-а против инфекције ЦОВИД-19 вероватно зависи од двосмерне интеракције између ПЦ-а и микробиоте црева. Стога би даље разумевање тога како ЦОВИД-19 утиче на микробиоту црева и утицаја ових промена на трансформацију рачунара током варења такође било корисно за дизајнирање рационалне употребе ПЦ-а као додатака за ЦОВИД-19терапију.
Пошто ПЦ постаје протагонисти у нутриционистичком сценарију за ЦОВИД-19, без опсежних студија на људима, овај преглед би могао да послужи као основа за дизајнирање клиничких испитивања у том погледу.

Признања
ЦИА за индивидуални грант ЦЕЕЦИНД/04801/2017. иНОВА4Хеалтх– УИДБ/04462/2020 и УИДП/04462/2020, програм који финансијски подржава Фундацао пара а Циенциа е Тецнологиа/Министерио даЦиенциа, Тецнологиа е Енсино Супериор, преко националних фондова. Финансирање из програма ИНТЕРФАЦЕ, преко Фонда за иновације, технологију и циркуларну економију (ФИТЕЦ), такође је захвално. Аутори се захваљују нутриционисти АлланаВ. Бразилу за љубазну помоћ у цртању слике 3 и графичког сажетка.
Декларација о конкурентским интересима
Аутори изјављују да нема сукоба интереса.
Додатни материјал
Додатни материјал повезан са овим чланком може се наћи, у онлајн верзији, на дои:10.1016/ј.јнутбио.2021.108787.
Паула Р. Аугусти а,∗, Греици ММ Цонтерато б, Цристиане Ц. Денардинц, Инес Д. Празерес д,е, Ана Тереса Серра д,е, Мариа Р. Бронза д,е,ф, Татиана Емануелли г
Институто де Циенциа е Тецнологиа де Алиментос, Универсидаде Федерал до Рио Гранде до Сул (УФРГС), Порто Алегре, РС, Бразил
б Лабораторио де Фисиологиа да Репродуцао Анимал, Департаменто де Агрицултура, Биодиверсидаде е Флореста, Центро де Циенциас Рураис, Универсидаде Федерал де Санта Цатарина, Цампус де Цуритибанос, Цуритибанос, СЦ, Бразил
ц Универсидаде Федерал До Пампа, Цампус Уругуаиана, Уругуаиана, РС, Бразил
д иБЕТ, Институто де Биологиа Екпериментал
е Тецнологица, Оеирас, Португал е Институто де Тецнологиа Куимица е Биологица Антонио Ксавиер, Универсидаде Нова де Лисбоа, Оеирас, Португал
ф иМЕД, Фацулдаде де Фармациа да Универсидаде де Лисбоа, Лисбоа, Португал
г Нуцлео Интеградо де Десенволвименто ем Аналисес Лабораториаис (НИДАЛ), Департаменто де Тецнологиа е Циенциа дос Алиментос, Универсидаде Федерал де Санта Мариа, Санта Мариа, РС, Бразил
Референце
[1] Абба И, Хассим Х, Хамзах Х, Ноордин ММ. Антивирусна активност ресвератрола против хуманих и животињских вируса. Адв Вирол 2015;2015:184241. дои:10.1155/ 2015/184241.
[2] Ахмад СФ, Аттиа СМ, Бакхеет СА, Зохеир КМА, Ансари МА, ет ал. Нарингин ублажава развој акутне упале плућа изазване карагенаном инхибицијом НФ-κб, СТАТ3 и проинфламаторних медијатора и повећањем ИκБ и антиинфламаторних цитокина. Инфламација 2015;38:846–57. дои:10.1007/с10753-014-9994-и.
[3] Алмеида АФ, Борге ГИА, Пискула М, Тудосе А, Тудореану Л, Валентова К, ет ал. Биорасположивост кверцетина код људи са фокусом на интериндивидуалне варијације. Цомпрехенсиве Рев Фоод Сци Безбедност хране 2018;17(3):714–31. дои:10.1111/1541-4337.12342.
[4] Алмеида Л, Ваз-да-Силва М, Фалцао А, Соарес Е, Цоста Р, Лоуреиро АИ, ет ал. Фармакокинетички и безбедносни профил транс-ресвератрола у растућој студији вишеструких доза код здравих добровољаца. Мол Нутритион Фоод Рес 2009;53(1):7–15. дои:10.1002/мнфр.200800177.
[5] Амић Д, Давидовић-Амић Д, Бесло Д, Растија В, Лучић Б, Тринајстић Н. САР и КСАР антиоксидативне активности флавоноида. Цурр Мед Цхем 2007;14:827–45. дои:10.2174/092986707780090954.
[6] Ананд П, Куннумаккара АБ, Невман РА, Аггарвал ББ. Биорасположивост куркумина: проблеми и обећања. Цурр Мед Цхем 2013;20(20):2572–82. дои:10.2174/09298673113209990120.
[7] Андрес С, Певни С, Зиегенхаген Р, Бакхииа Н, Сцхафер Б, Хирсцх-Ернст КИ, ет ал. Безбедносни аспекти употребе кверцетина као дијететског суплемента. Мол Нутритион Фоод Рес 2018;62(1):1–15. дои:10.1002/мнфр.201700447.
[8] Аннунзиата Г, Сандуззи Зампарелли М, Санторо Ц, Циампаглиа Р, Стор наиуоло М, ет ал. Могу ли полифеноли имати улогу против инфекције коронавирусом? Преглед ин витро доказа. Фронт Мед 2020; 7:1–7 мај. дои:10.3389/ фмед.2020.00240.
[9] Апарицио-Сото М, Редху Д, Санцхез-хидалго М, Бабина М. Полифеноли добијени из маслиновог уља ефикасно ублажавају инфламаторне одговоре људских кератиноцита ометајући НФ-κБ пут. Мол Нутрит Фоод Рес 2019;63(21):е1900019. дои:10.1002/мнфр.201900019.
[10] Аппелдоорн ММ, Винцкен ЈП, Аура АМ, Холлман ПЦХ, Группен Х. Димере процијанидина метаболише људска микробиота са 2-(3,4- дихидроксифенил)сирћетном киселином и 5-( 3,4-дихидроксифенил)- - валеролактон као главни метаболити. Ј Агрицулт Фоод Цхем 2009;57(3):1084–92. дои:10.1021/јф803059з.
[11] Асхер ГН, Цорбетт АХ, Хавке РЛ. Уобичајене интеракције биљних додатака исхрани и лекова. Ам Фамили Пхис 2017;96(2):101–7.
[12] Асхикава К, Мајумдар С, Банерјее С, Бхарти АЦ, Схисходиа С, Аггарвал ББ. Пицеатаннол инхибира ТНФ-индуковану активацију НФ-κБ и експресију гена посредовану НФ-κБ кроз супресију ИκБ киназе и фосфорилације п65. Ј Иммунол 2002;169(11):6490–7. дои:10.4049/јиммунол.169.11.6490.
[13] Бергинц К, Милисав И, Кристл А. Флавоноиди белог лука и органосулфурна једињења: утицај на хепатичку фармакокинетику саквинавира и дарунавира. Друг Метаб Пхармацокинетицс 2010;25(6):521–30. дои:10.2133/дмпк.ДМПК-10-РГ-053.
[14] Боде ЛМ, Бунзел Д, Хуцх М, Цхо ГС, Рухланд Д, Бунзел М, ет ал. Ин виво и ин витро метаболизам транс-ресвератрола помоћу микробиоте људског црева. Ам Ј Цлин Нутрит 2013;97(2):295–309. дои:10.3945/ајцн.112.049379.
[15] Бианцателли РМЛЦ, Беррилл М, Цатравас ЈД, Марик ПЕ. Кверцетин и витамин Ц: експериментална, синергистичка терапија за превенцију и лечење болести повезаних са САРС-ЦоВ-2 (ЦОВИД-19). Фронт Иммунол 2020;11:1–11 јун. дои:10.3389/фифимму.2020.01451.
[16] Бурак Ц, Брулл В, Ланггутх П, Зиммерманн БФ, Стоффел-Вагнер Б, Саусен У, ет ал. Виши нивои кверцетина у плазми након оралне примене екстракта коже лука у поређењу са чистим кверцетин дихидратом код људи. Еур Ј Нутрит 2017;56(1):343–53. дои:10.1007/с00394-015-1084-к.
[17] Цаи ЗИ, Ли КСМ, Лианг ЈП, Ксианг ЛП, Ванг КР, Схи ИЛ, ет ал. Биорасположивост катехина чаја и његово побољшање. Молецулес 2018;23(9):10–13. дои:10.3390/ молецулес23092346.
[18] Цеццхини Р, Цеццхини АЛ. Патогенеза инфекције САРС-ЦоВ-2 повезана је са оксидативним стресом као одговором на агресију. Мед Хипотхесес 2020. дои:10.1016/ ј.мехи.2020.110102.
[19] Церкуеира АМ, Кхапер Н, Леес СЈ, Уланова М. Модел инфекције Псеудомонас аеругиноса епителних ћелија плућа 1. Цан Ј Пхисиол Пхармацол 2013;255:248–55 јануар.
[20] Цхацхаи ВС, Киркпатрицк ЦМЈ, Хицкман ИЈ, Фергусон М, Принс ЈБ, Мартин ЈХ. Ресвератрол - пилуле које замењују здраву исхрану? Бр Ј Цлин Пхармацол 2011;72(1):27–38. дои:10.1111/ј.1365-2125.2011.03966.к.
[21] Цхеццони П, Де Ангелис М, Марцоцци МЕ, Фратернале А, Магнани М, Пала мара АТ, ет ал. Редокс-модулациона средства у лечењу вирусних инфекција. Инт Ј Мол Сци 2020;21(11):1–21. дои:10.3390/ијмс21114084.
[22] Цхен ЦН, Лин ЦПЦ, Хуанг КК, Цхен ВЦ, Хсиех ХП, Лианг ПХ, ет ал. Инхибиција активности протеазе сличне САРС-ЦоВ 3Ц помоћу теафлавина-3,3 - галата (ТФ3). Комплементарна алтернативна медицина заснована на доказима 2005;2(2):209–15. дои:10.1093/ецам/нех081.
[23] Цхен Ц, Зуцкерман ДМ, Брантлеи С, Схарпе М, Цхилдресс К, Хоицзик Е, Пендлетон АР. Екстракти Самбуцус нигра инхибирају вирус инфективног бронхитиса у раној тачки током репликације. БМЦ Вет Рес 2014;10:24. дои:10.1186/ 1746-6148-10-24.
[24] Цхен Ц, Јианг Кс, Лаи И, Лиу И, Зханг З. Ресвератрол штити од оксидативног оштећења изазваног арсеник триоксидом кроз одржавање хомеостазе глутатиона и инхибицију апоптотске прогресије. Пхисиол Бехав 2016;176(12):139–48. дои:10.1016/ј.пхисбех.2017.03.040.
[25] Цхен Ј, Ианг Ј, Ма Л, Ли Ј, Схахзад Н, Ким ЦК. Однос структуре и антиоксидативне активности група метокси, фенол хидроксил и карбоксилне киселине фенолних киселина. Научни представник 2020;10:2611. дои:10.1038/ с41598-020-59451-з.
[26] Цонте Л, Торалдо ДМ. Усмеравање на осовину микробиоте црева и плућа помоћу дијете богате влакнима и пробиотика може имати антиинфламаторне ефекте код инфекције ЦОВИД{3}}. Тхерапеут Адв Респир Дис 2020;14:1–5. дои:10.1177/ 1753466620937170. [27] Цоперцхини Ф, Цхиовато Л, Цроце Л, Магри Ф, Ротонди М. Олуја цитокина у ЦОВИД-19: преглед укључености система хемокина/хемокина рецептора. Цитокински фактор раста Рев 2020;53:25–32 мај. дои:10. 1016/ј.цитогфр.2020.05.003.
[28] Цортес-Мартин А, Селма МВ, Томас-Барберан ФА, Гонзалез-Сариас А, Еспин ЈЦ. Где погледати загонетку полифенола и здравља? Постбиотици и микробиота црева су повезани са људским Метабо типовима. Мол Нутрит Фоод Рес 2020;64(9):1–17 Тсилингири. дои:10.1002/мнфр.201900952.
[29] Цуи К, Фу К, Зхао Кс, Сонг Кс, Иу Ј, Ианг И, ет ал. Заштитни ефекти и имуномодулација на прасад заражену ротавирусом након додавања ресвератрола. ПЛоС Оне 2018;13(2):1–11. дои:10.1371/јоурнал.поне.0192692.
[30] Д'Арцхивио М, Филеси Ц, Вари Р, Сцаззоццхио Б, Маселла Р. Биорасположивост полифенола: статус и контроверзе. Инт Ј Мол Сци 2010;11(4):1321–42. дои:10.3390/ијмс11041321.
[31] Даи Т, Схи К, Цхен Г, Схен И, Пан Т. Малвидин ублажава бол и упалу код пацова са остеоартритисом потискивањем НФ-κБ сигналног пута. Инфлламм Рес 2017;66(12):1075–84. дои:10.1007/с00011-017-1087-1096.
[32] Дел Рио Д, Родригуез-Матеос А, Спенцер ЈПЕ, Тогнолини М, Боргес Г, Црозиер А. Дијететски (поли)феноли у здрављу људи: структуре, биорасположивост и докази заштитних ефеката против хроничних болести. Антиоксиданси и редокс сигнализација 2013;18(14):1818–92. дои:10.1089/арс.2012.4581.
[33] Делгадо-Роцхе Л, Места Ф. Оксидативни стрес као кључни играч у инфекцији вирусом корона вирусом тешког акутног респираторног синдрома (САРС-ЦоВ). Арцх Мед Рес 2020;51(5):384–7. дои:10.1016/ј.арцмед.2020.04.019.
[34] Дериу Е, Бокк ГМ, Хе Кс, Пан Ц, Бенавидез СД, Цен Л, ет ал. Вирус грипа утиче на цревну микробиоту и секундарну инфекцију салмонелом у цревима путем интерферона типа И. ПЛоС Патхогенс 2016;12(5):1–26. дои:10.1371/ јоурнал.ппат.1005572.
[35] Донг ВВ, Лиу ИЈ, Лв З, Мао ИФ, Ванг ИВ, Зху КСИ, ет ал. Заштита плућне ендотелне баријере помоћу ресвератрола укључује инхибицију ослобађања ХМГБ1 и митохондријалног оксидативног оштећења изазваног ХМГБ1- преко механизма који зависи од Нрф2-. Фрее Рад Биол Мед 2015;88(Део Б):404–16. дои:10. 1016/ј.фреерадбиомед.2015.05.004.
[36] Ду ГЈ, Зханг З, Вен КСД, Иу Ц, Цалваи Т, Иуан ЦС, ет ал. Епигалокатехин галат (ЕГЦГ) је најефикаснији полифенол за хемопревенцију рака у зеленом чају. Нутриентс 2012;4(11):1679–91. дои:10.3390/ну4111679.
[37] Дуенас М, Сурцо-Лаос Ф, Гонзалез-Манзано С, Гонзалез-Парамас АМ, Сантос Буелга Ц. Антиоксидативна својства главних метаболита кверцетина. Еур Фоод Рес Тецхнол 2011;232:103–11. дои:10.1007/с00217-010-1363-и.
[38] Дуенас М, Муноз-Гонзалез И, Цуева Ц, Јименез-Гирон А, Санцхез-Патан Ф, Сантос-Буелга Ц, ет ал. Истраживање модулације цревне микробиоте полифенолима у исхрани. БиоМед Рес Инт 2015:850902 2015. дои:10.1155/2015/850902.
[39] Ел Каламоуни Ц, Фруменце Е, Бос С, Турпин Ј, Нативел Б, Харраби В, ет ал. Субверзија антивирусне активности хем оксигеназе-1 вирусом зика. Вируси 2019;11(1):1–13. дои:10.3390/в11010002.
[40] Елсаиед С, Зханг К. Људска инфекција узрокована Цлостридиум хатхеаваии. Емерг Инфецт Дис 2004;10(11):1950–2. дои:10.3201/еид1011.040006.
[41] Еспин ЈЦ, Гонзалез-Сарриас А, Томас-Барберан ФА. Микробиота црева: кључни фактор у терапијским ефектима (поли)фенола. Биоцхем Пхармацол 2017; 139:82–93 сеп. дои:10.1016/ј.бцп.2017.04.033.
[42] Фалцхетти Р, Фуггетта МП, Ланзилли Г, Трицарицо М, Равагнан Г. Ефекти ресвератрола на функцију људских имуних ћелија. Лифе Сци 2001;70(1):81–96. дои:10.1016/ С0024-3205(01)01367-4.
[43] Ферлаззо Н, Висалли Г, Смериглио А, Цирми С, Ломбардо ГЕ, Цампиглиа П, ет ал. Флавоноидна фракција сокова од поморанџе и бергамота штити епителне ћелије људских плућа од оксидативног стреса изазваног водоник-пероксидом. Допунски Алт Мед 2015. заснован на доказима:957031 2015. дои:10.1155/2015/957031.
[44] Администрација хране и лекова. ГРАС обавештење за кверцетин високе чистоће; 2010. стр. 1–41.
[45] Форман ХЈ, Давиес КЈА, Урсини Ф. Како нутритивни антиоксиданси заиста функционишу: нуклеофилни тон и пара-хормеза насупрот уклањању слободних радикала ин виво. Фрее Рад Биол Мед 2014;66:24–35. дои:10.1016/ј.фреерадбиомед.2013.05.045.
[46] Форрестер ЈД, Шпанија ДА. Бактеремија Цлостридиум рамосум: приказ случаја и преглед литературе. Сург Инфецт 2014;15(3):343–6. дои:10.1089/сур.2012.240.
[47] Фрага ЦГ, Црофт КД, Кеннеди ДО, Томас-Барберан ФА. Ефекти полифенола и других биолошки активних материја на људско здравље. Функција хране 2019;10(2):514–28. дои:10.1039/ц8фо01997е.
[48] Фрага ЦГ, Галлеано М, Верстраетен СВ, Отеиза ПИ. Основни биохемијски механизми који стоје иза здравствених предности полифенола. Мол Аспецтс Мед 2010;31(6):435–45. дои:10.1016/ј.мам.2010.09.006.
[49] Фуггетта МП, Бордигнон В, Цоттарелли А, Маццхи Б, Фрезза Ц, Цордиали-Феи П, ет ал. Смањење проинфламаторних цитокина у Т ћелијама инфицираним ХТЛВ-1- ресвератролом. Ј Екп Цлин Цанцер Рес 2016;35:118. дои:10.1186/ с13046-016-0398-8.
[50] Гамбини Ј, Инглес М, Оласо Г, Лопез-Груесо Р, Бонет-Цоста В, Гимено Малленцх Л, ет ал. Особине ресвератрола: ин витро и ин виво студије о метаболизму, биорасположивости и биолошким ефектима на животињским моделима и људима. Оксидативни Мед Целлулар Лонгевити 2015:837042 2015. дои:10.1155/2015/837042.
[51] Гао К, Ксу А, Крул Ц, Венема К, Лиу И, Ниу И, ет ал. Од главних фенолних киселина које се формирају током микробне ферментације чаја, цитруса и додатака флавоноида соје код људи, само 3,4-дихидроксифенилсирћетна киселина има антипролиферативну активност. Ј Нутрит 2006;136(1):52–7. дои:10.1093/јн/136.1.52.
[52] Гаттинони Л, Цоппола С, Црессони М, Бусана М, Росси С, Цхиумелло Д. ЦОВИД-19 не доводи до „типичног“ синдрома акутног респираторног дистреса. Ам Ј Респир Црит Царе Мед 2020;201(10):1299–300. дои:10.1164/рццм.{9}}ЛЕ.
[53] Гева-Заторски Н, Сефифик Е, Куа Л, Пасман Л, Тан ТГ, Ортиз-Лопез А, ет ал. Ископавање микробиоте људског црева за имуномодулаторне организме. Целл 2017;168(5):928–43. дои:10.1016/ј.целл.2017.01.022.
[54] Гхосх Р, Цхакраборти А, Бисвас А, Цховдхури С. Евалуација полифенола зеленог чаја као инхибитора главне протеазе (Мпро) новог коронавируса (САРС ЦоВ-2) – ин силицо пристајање и студија симулације молекуларне динамике. Ј Биомол Струцт Дин 2020;0(0):1–13. дои:10.1080/07391102.2020.1779818.
[55] Глински ГВ. Трипартитна комбинација кандидата за ублажавање пандемије: витамин Д, кверцетин и естрадиол манифестују својства медицинских агенаса за циљано ублажавање пандемије ЦОВИД-19 дефинисане праћењем САРС-ЦоВ-2 циљева код људи вођеним геномиком ћелије. Биомедицине 2020;8:129. дои:10.3390/биомедицинес8050129.
[56] Гоулд КС, Листер Ц, Андерсен ОМ, Маркхам КР. Флавоноиди функционишу у биљкама. У: Флавоноиди, хемија, биохемија и примена. Боца Ратон: ЦРЦ Пресс; 2006. стр. 397–442.
[57] Гу С, Цхен И, Ву З, Цхен И, Гао Х, Лв Л, ет ал. Промене цревне микробиоте код пацијената са ЦОВИД-19 или грипом Х1Н1. Цлин Инфецт Дис 2020 циаа709. дои:10.1093/цид/циаа709.
[58] Ха СК, Парк ХИ, Еом Х, Ким И, Цхои И. Фракција нарирутина из коре цитруса ублажава инфламаторни одговор стимулисан ЛПС-ом кроз инхибицију активације НФ-κБ и МАПКс. Фоод Цхем Токицол 2012;50(10):3498–504. дои:10. 1016/ј.фцт.2012.07.007.
[59] Хахн М, Баиерле М, Цхарао МФ, Буболс ГБ, Гравина ФС, Зиелински П, ет ал. Храна богата полифенолима уопште и о ефектима трудноће: преглед. Друг Цхем Токицол 2017;40(3):368–74. дои:10.1080/01480545.2016.1212365.
[60] Хирано Т, Мураками М. ЦОВИД-19: нови вирус, али познат синдром ослобађања рецептора и цитокина. Имунитет 2020. дои:10.1016/ј.иммуни.2020.04.003.
[61] Хоффманн М, Клеине-Вебер Х, Сцхроедер С, Кругер Н, Херрлер Т, Ерицхсен С, ет ал. Улазак у САРС-ЦоВ-2 ћелије зависи од АЦЕ2 и ТМПРСС2 и блокиран је клинички доказаним инхибитором протеазе. Целл 2020;181(2):271–280.е8. дои:10. 1016/ј.целл.2020.02.052.
[62] Ху Ј, Вебстер Д, Цао Ј, Схао А. Безбедност конзумирања зеленог чаја и екстракта зеленог чаја код одраслих – резултати систематског прегледа. Регулатори Токицол Пхармацол 2018; 95:412–33 март. дои:10.1016/ј.иртпх.2018.03.019.
[63] Хугует-Цаскуеро А, Морено-Састре М, Лопез-Мендез ТБ, Гаинза Е, Пе драз ЈЛ. Инкапсулација олеуропеина у наноструктурираним липидним носачима: биокомпатибилност и антиоксидативна ефикасност у епителним ћелијама плућа. Фармацеутика 2020;12(5):429. дои:10.3390/пхармацеутицс12050429.
[64] Хванг БИ, Лее ЈХ, Коо ТХ, Ким ХС, Хонг ИС, Ро ЈС, ет ал. Кауран дитерпени из Исодон јапоницус инхибирају производњу азотног оксида и простагландина Е2 и активацију НФ-κБ у ћелијама макрофага РАВ264.7 стимулисаним ЛПС. Планта Медица 2001;67(5):406–10.
[65] Хибертсон БМ, Гао Б, Босе С, МцЦорд ЈМ. Фитокемијска комбинација ПБ125 активира Нрф2 пут и индукује ћелијску заштиту од оксидативних повреда. Антиоксиданси 2019;8(5):1–21. дои:10.3390/антиок8050119.